
Função e Bases Moleculares › Combustível: obter, queimar e guardar energia
O combustível muda de mão
Integração metabólica no estado alimentado, jejum e estresse
Como fígado, músculo, tecido adiposo, cérebro e hemácias negociam energia entre a refeição, o jejum e o estresse
O caso
Aldo, 52 anos, procura atendimento por três meses de sede intensa, poliúria, noctúria, fome aumentada e perda involuntária de seis quilos. Ele associa o cansaço ao trabalho e a visão borrada ao uso de telas. A cintura aumentou ao longo dos anos, há história familiar de diabetes e duas candidíases genitais recentes. Os sintomas parecem pertencer a sistemas diferentes, mas podem ser lidos como uma única falha de distribuição de combustível.
Depois do almoço, a glicose deveria deixar o intestino, passar transitoriamente pelo sangue e ser captada ou armazenada. Em Aldo, há glicose abundante no compartimento vascular, mas tecidos metabolicamente importantes recebem um sinal insuficiente de disponibilidade. O fígado continua produzindo glicose, o adipócito continua liberando ácidos graxos e o músculo reduz a captação mediada por insulina. É possível estar hiperglicêmico no sangue e, ao mesmo tempo, manter programas celulares próprios do jejum.
A urina frequente não é apenas um sintoma renal. Quando a carga filtrada ultrapassa a capacidade de reabsorção, a glicose permanece no túbulo, retém água e produz diurese osmótica. A sede tenta compensar a perda. A perda calórica urinária e o acesso inadequado do músculo e do tecido adiposo ao combustível ajudam a explicar o emagrecimento apesar da polifagia. A candidíase encontra um hospedeiro cuja barreira e resposta imune funcionam em um meio metabolicamente alterado.
O caso só fecha quando se abandona a ideia de que cada via metabólica funciona isoladamente. Glicólise, glicogênese, glicogenólise, gliconeogênese, lipólise, beta-oxidação e cetogênese são capítulos de uma mesma negociação entre órgãos. A variável organizadora não é simplesmente a concentração de um hormônio, mas a relação entre sinais de abundância e escassez, modificada por atividade física, duração do jejum, reservas prévias, doença e estresse.
Este capítulo acompanha uma molécula de carbono e uma decisão hormonal através do corpo. A pergunta central é: quem recebe, quem armazena e quem exporta combustível em cada estado? Ao respondê-la, os sintomas de Aldo deixam de ser uma lista e passam a ser a consequência previsível de um organismo que perdeu a transição correta entre o estado alimentado e o jejum.
O mecanismo
Metabolismo integrado é uma coordenação entre órgãos. A mesma molécula pode ter destinos diferentes conforme o tecido. O fígado capta glicose e a armazena como glicogênio, mas também consegue devolver glicose ao sangue porque expressa glicose-6-fosfatase. O músculo guarda glicogênio para uso próprio e não o exporta como glicose livre. O tecido adiposo esterifica ácidos graxos em triacilglicerol quando há abundância e os mobiliza quando a insulina cai. O cérebro depende continuamente de combustível circulante; as hemácias, sem mitocôndrias, dependem sempre de glicólise e devolvem lactato.
Após a refeição, glicose e aminoácidos elevam a secreção de insulina, enquanto a relação insulina/glucagon aumenta. No fígado, a glicose entra por transportadores não dependentes de insulina e é direcionada à glicogênese, glicólise e, quando o suprimento excede a capacidade imediata, síntese de ácidos graxos. No músculo e no tecido adiposo, a insulina favorece a translocação de GLUT4 para a membrana. O músculo repõe glicogênio e aumenta síntese proteica; o adipócito capta glicose, recebe ácidos graxos liberados de lipoproteínas pela lipoproteína-lipase e reconstitui triacilglicerol.
A insulina não é apenas uma autorização para entrar glicose. Ela é sobretudo um sinal que freia a exportação de combustível armazenado: reduz glicogenólise e gliconeogênese hepáticas, inibe a lipólise adiposa e limita a cetogênese. Por isso, resistência à insulina não significa ausência completa de efeito. Diferentes tecidos e vias podem tornar-se resistentes em graus diferentes; o fígado pode continuar produzindo glicose enquanto a hiperinsulinemia ainda favorece parte da síntese lipídica.
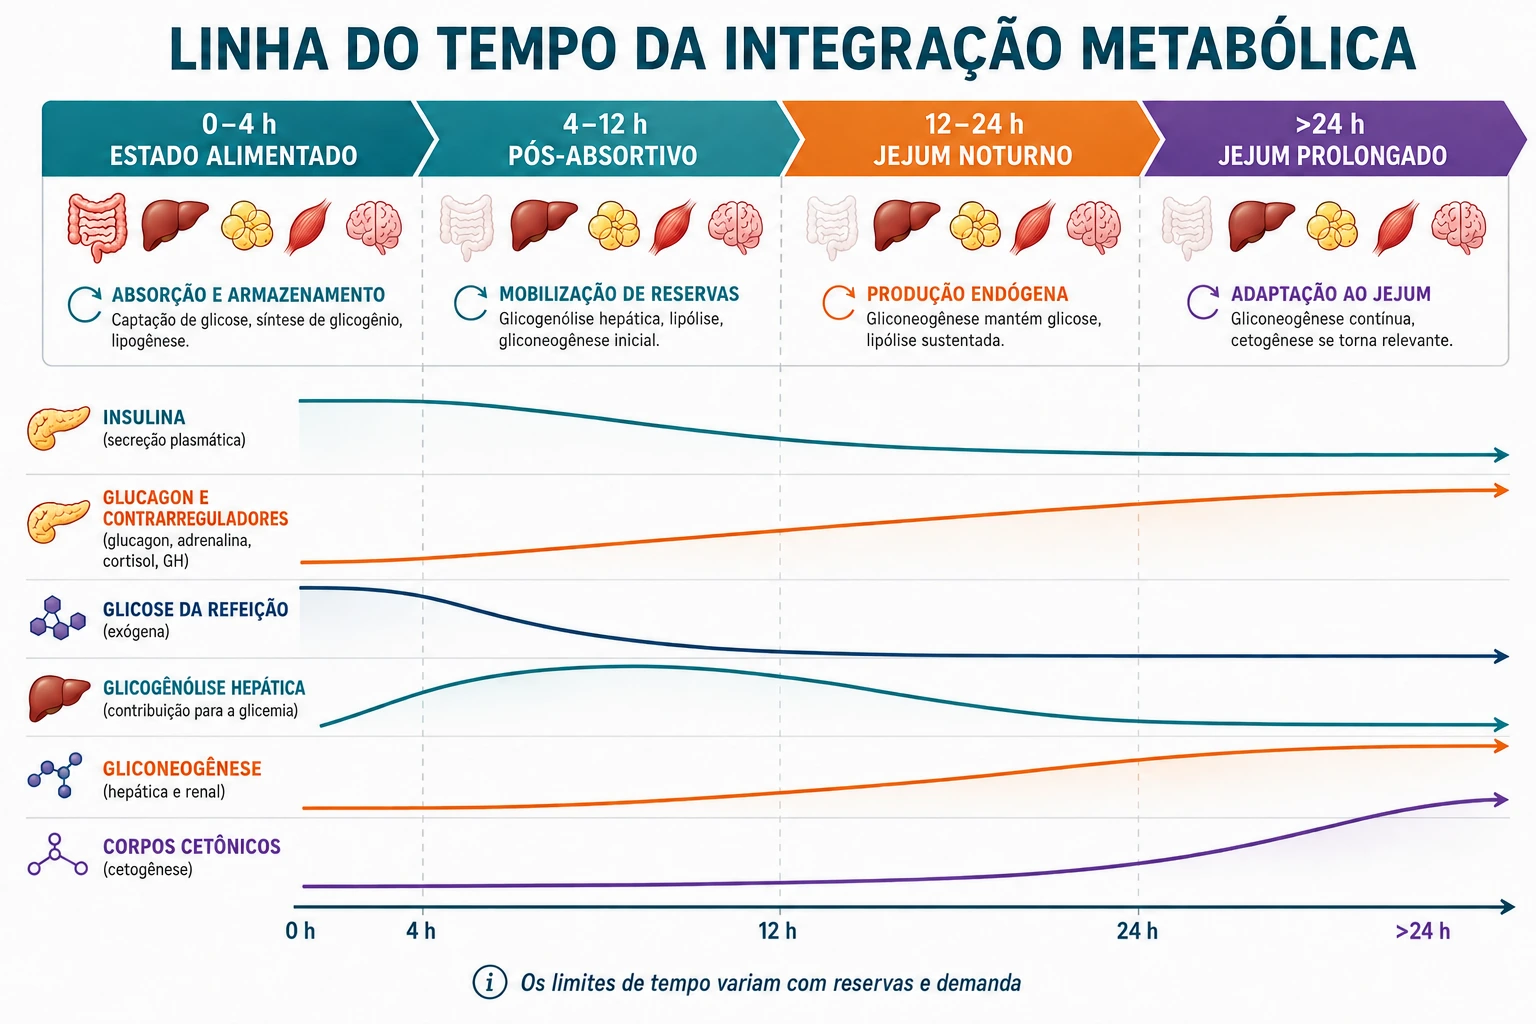
No período pós-absortivo, a entrada intestinal diminui e a relação insulina/glucagon cai. A primeira resposta hepática é mobilizar glicogênio. Essa reserva sustenta a glicemia nas horas iniciais, mas é finita. Em paralelo, a gliconeogênese já existe e ganha importância conforme o jejum se prolonga. Os limites de 12 ou 24 horas são aproximações: exercício, febre, dieta prévia, massa hepática e estoque de glicogênio mudam a velocidade da transição.
A gliconeogênese não cria carbono do nada. O fígado — e, em jejum prolongado, o córtex renal — reorganiza lactato, alanina, glicerol e outros precursores em glicose. O lactato vem especialmente de hemácias e músculo e retorna pelo ciclo de Cori. A alanina transporta carbono e nitrogênio do músculo ao fígado. O glicerol é liberado na lipólise adiposa. Ácidos graxos de cadeia par geram acetil-CoA, mas não produzem glicose líquida em humanos: o acetil-CoA ativa a piruvato-carboxilase e fornece energia para a gliconeogênese, porém seus carbonos se perdem como dióxido de carbono no ciclo do ácido cítrico.
Com menos insulina e maior ação catecolaminérgica, o adipócito ativa lipólise. Ácidos graxos livres circulam ligados à albumina e abastecem músculo e fígado; o glicerol segue para a gliconeogênese. No hepatócito, a beta-oxidação gera ATP, NADH e acetil-CoA. Quando a oxaloacetato é atraído para a gliconeogênese e a oferta de acetil-CoA excede a capacidade oxidativa, cresce a cetogênese. Acetoacetato e beta-hidroxibutirato são exportados e utilizados por tecidos extra-hepáticos; o próprio fígado não os consome.
No jejum prolongado, o cérebro aumenta progressivamente o uso de corpos cetônicos. Isso poupa glicose e reduz a necessidade de degradar proteína muscular para produzir precursores gliconeogênicos. Ainda assim, algumas células continuam obrigatoriamente glicolíticas. Hemácias não têm mitocôndria e, portanto, não oxidam ácidos graxos nem corpos cetônicos. A medula renal e outras regiões relativamente hipóxicas também preservam dependência significativa de glicose.
Estresse agudo não é simplesmente jejum mais intenso. Catecolaminas elevam rapidamente glicogenólise e lipólise; glucagon favorece a produção hepática de glicose; cortisol e hormônio do crescimento sustentam substratos e reduzem a ação periférica da insulina. Citocinas inflamatórias alteram a sinalização e a distribuição de nutrientes. O resultado adaptativo é oferecer combustível a órgãos prioritários, mas doença grave e prolongada pode produzir hiperglicemia, proteólise e resistência à insulina com custo clínico.
O exercício acrescenta uma exceção importante ao mapa. A contração muscular promove translocação de GLUT4 por vias parcialmente independentes da insulina. Durante a atividade, o músculo aumenta a captação de glicose e a oxidação de ácidos graxos; depois, a sensibilidade à insulina permanece aumentada para recompor glicogênio. Portanto, um músculo resistente à insulina em repouso ainda pode captar glicose em resposta à contração.
Em diabetes tipo 2, a resistência à insulina e a falência progressiva da célula beta desalinham o sistema. O fígado não suprime adequadamente a produção de glicose, o músculo capta menos glicose e o tecido adiposo libera mais ácidos graxos. Na deficiência absoluta de insulina, típica do diabetes tipo 1 descompensado, a lipólise e a cetogênese perdem um freio essencial, criando risco de cetoacidose. No diabetes tipo 2, a insulina residual costuma restringir a cetogênese, embora não elimine o risco em situações específicas.
A hiperglicemia de estresse e o diabetes crônico podem coexistir, mas não são sinônimos. Uma medida elevada durante doença aguda exige interpretação com história, repetição e marcadores de exposição glicêmica prolongada. O princípio é o mesmo do restante do capítulo: um número isolado não revela o estado metabólico; é preciso situá-lo no tempo, no órgão e no conjunto de sinais hormonais.
O que o mecanismo explica
Seis perguntas para transformar vias isoladas em uma negociação entre órgãos.
“Por que Aldo perde peso apesar da fome aumentada?”
Perde glicose na urina e não suprime adequadamente lipólise e catabolismo, desperdiçando energia enquanto alguns tecidos recebem sinal insuficiente de abundância.
“Por que o fígado produz glicose quando ela já está alta?”
A resistência à insulina e a relação hormonal inadequada impedem a supressão normal de glicogenólise e gliconeogênese.
“Qual reserva mantém primeiro a glicemia no jejum?”
O glicogênio hepático contribui cedo; a gliconeogênese ocorre em paralelo e assume participação crescente.
“Por que gordura não vira glicose líquida?”
Ácidos graxos pares formam acetil-CoA, cujos carbonos não retornam de modo líquido a piruvato ou oxaloacetato em humanos.
“Quem ainda precisa de glicose no jejum prolongado?”
Hemácias, por não terem mitocôndria, permanecem dependentes de glicólise e produzem lactato.
“O que o exercício muda?”
A contração recruta GLUT4 por sinal parcialmente independente da insulina e aumenta a captação muscular de glicose.
Como se orientar
- Começar pelo estado
- Pergunte se há entrada intestinal, duração do jejum, exercício ou estresse.
- Separar órgãos
- Fígado exporta; músculo guarda para si; adipócito armazena ou libera; cérebro e hemácia consomem.
- Ler a relação hormonal
- Insulina, glucagon e contrarreguladores formam um gradiente, não um interruptor.
- Rastrear o carbono
- Glicose, lactato, alanina, glicerol, ácidos graxos e cetonas conectam tecidos.
- Localizar o freio
- A insulina suprime exportação hepática, lipólise e cetogênese.
- Respeitar o tempo
- Glicogênio domina cedo; gliconeogênese e cetonas ganham participação progressiva.
- Voltar ao paciente
- Poliúria, sede, perda de peso e candidíase podem nascer da mesma falha distributiva.
O raciocínio
Da refeição ao estresse, sempre responda quem fornece, quem recebe e qual sinal governa a troca.
- 1
Definir o intervalo desde a refeição
A entrada intestinal distingue o estado alimentado do pós-absortivo.
Erro comum: Chamar todo período sem comer de jejum metabólico equivalente.
- 2
Estimar a relação insulina/glucagon
A relação alta favorece armazenamento; a relação baixa favorece mobilização.
Erro comum: Procurar um único hormônio que explique todo o organismo.
- 3
Mapear o fígado
No alimentado, armazena e sintetiza; no jejum, exporta glicose e cetonas.
Erro comum: Imaginar o fígado apenas como consumidor.
- 4
Mapear o músculo
GLUT4 responde à insulina e à contração; o glicogênio muscular permanece local.
Erro comum: Supor que o músculo corrige diretamente a glicemia exportando sua reserva.
- 5
Mapear o adipócito
Insulina favorece esterificação e freia lipólise; sua queda libera ácidos graxos e glicerol.
Erro comum: Atribuir a lipólise humana principalmente a uma ação direta do glucagon.
- 6
Preservar consumidores obrigatórios
Hemácias usam glicose em qualquer estado e devolvem lactato.
Erro comum: Dizer que todo o organismo passa a usar gordura no jejum.
- 7
Ordenar as fontes de glicose
Glicogênio hepático atua cedo; gliconeogênese cresce com o tempo.
Erro comum: Fixar uma hora universal para a troca entre vias.
- 8
Listar precursores
Lactato, alanina e glicerol levam carbono ao fígado; rim participa mais no jejum prolongado.
Erro comum: Incluir acetil-CoA como fonte líquida de glicose.
- 9
Conectar lipólise à gliconeogênese
Ácidos graxos fornecem energia; glicerol fornece carbono gliconeogênico.
Erro comum: Dizer que os carbonos do ácido graxo viram diretamente glicose.
- 10
Explicar a cetogênese
Excesso de acetil-CoA hepático é convertido em combustível exportável.
Erro comum: Chamar corpos cetônicos de mero resíduo tóxico.
- 11
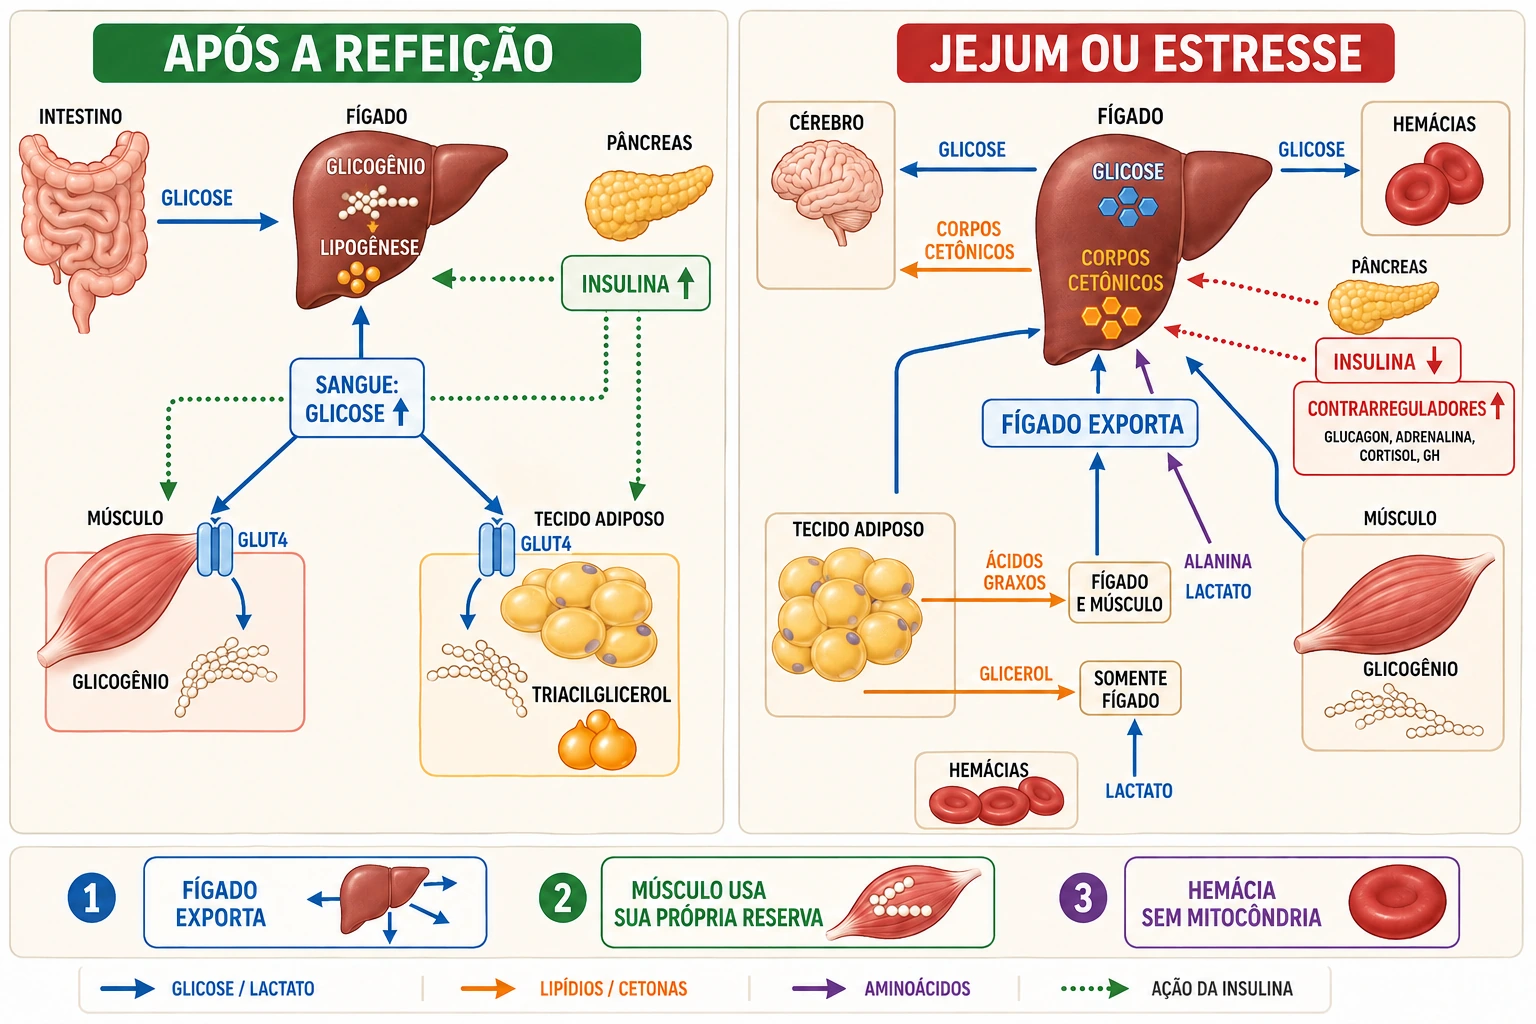
O mapa muda com o estado: o fígado alterna armazenamento e exportação, enquanto cada tecido preserva suas restrições próprias. - 11
Adicionar o relógio do estresse
Catecolaminas agem rápido; cortisol e GH sustentam mobilização e resistência à insulina.
Erro comum: Tratar estresse como simples ausência de alimento.
- 12
Reconhecer a exceção do exercício
Contração recruta GLUT4 mesmo com sinal insulínico reduzido.
Erro comum: Prever que resistência à insulina bloqueia toda captação muscular.
- 13
Aplicar à hiperglicemia
Produção hepática excessiva, captação muscular menor e lipólise inadequada coexistem.
Erro comum: Explicar diabetes apenas por açúcar ingerido.
- 14
Explicar a diurese osmótica
Glicose tubular acima da reabsorção retém água e leva eletrólitos.
Erro comum: Separar poliúria da fisiopatologia metabólica.
- 15
Fechar pela perda de peso
Calorias urinárias e mobilização de reservas vencem a ingestão aumentada.
Erro comum: Usar a polifagia para excluir estado catabólico.
- 16
Não confundir estresse e cronicidade
História, repetição e marcador de exposição prolongada distinguem os contextos.
Erro comum: Rotular diabetes definitivo por um único valor durante doença aguda.
- 17
Responder a pergunta central
Em cada estado, nomeie fornecedor, consumidor, substrato e sinal.
Erro comum: Recitar vias sem reconstruir a experiência do paciente.
Esperado e alterado
- Elevação pós-prandial de insulina com supressão da produção hepática de glicose.
- Reposição de glicogênio hepático e muscular após a refeição.
- Lipólise reduzida no estado alimentado e aumentada no período pós-absortivo.
- Glicogenólise precoce e aumento progressivo da gliconeogênese no jejum.
- Maior uso cerebral de corpos cetônicos apenas com jejum prolongado.
- Captação muscular de glicose estimulada pela contração durante exercício.
- Hiperglicemia apesar de insulina circulante
- Resistência à ação insulínica e produção hepática não suprimida adequadamente.
- Poliúria e noctúria
- Diurese osmótica quando a carga filtrada de glicose excede a reabsorção.
- Polidipsia
- Resposta à perda de água e ao aumento da tonicidade efetiva.
- Perda de peso com polifagia
- Perda calórica urinária e mobilização inadequada de reservas.
- Ácidos graxos livres aumentados
- Insulina incapaz de suprimir plenamente a lipólise adiposa.
- Cetonemia importante com deficiência absoluta de insulina
- Perda do freio sobre lipólise e cetogênese, com risco de cetoacidose.
- Hiperglicemia durante doença crítica
- Contrarregulação e resistência à insulina; não prova isoladamente diabetes crônico.
- Candidíase genital recorrente
- Pista clínica compatível com exposição glicêmica aumentada no contexto correto.
Por que isso importa
A integração metabólica impede dois erros frequentes: atribuir uma doença a uma única via e tratar a concentração sanguínea como sinônimo de disponibilidade celular. No diabetes, o sangue contém excesso de glicose justamente porque a captação, o armazenamento e a supressão da produção endógena perderam coordenação. O problema não é falta absoluta de combustível no corpo; é combustível no compartimento errado, acompanhado de sinais hormonais inadequados.
A relação insulina/glucagon organiza grande parte da transição, mas não atua sozinha. Catecolaminas, cortisol, hormônio do crescimento, incretinas, citocinas, atividade muscular e sistema nervoso alteram o mapa. A linguagem de relação evita transformar fisiologia contínua em dois estados rígidos. Mesmo após uma refeição há alguma produção endógena; mesmo no jejum existe insulina basal; e as contribuições mudam gradualmente.
O fígado é o principal amortecedor da glicemia porque consegue tanto armazenar quanto exportar. A diferença entre glicogênio hepático e muscular decorre de expressão enzimática e finalidade fisiológica: o hepatócito possui glicose-6-fosfatase e atende ao organismo, enquanto a fibra muscular reserva combustível para a própria contração. Essa diferença simples resolve por que uma pessoa com grande massa muscular não consegue liberar diretamente toda essa reserva como glicose sanguínea.
A conservação de glicose no jejum também é uma conservação de proteína. Se o cérebro dependesse integralmente de glicose por muitos dias, a necessidade de aminoácidos gliconeogênicos imporia degradação muscular incompatível com sobrevivência prolongada. A cetoadaptação reduz essa exigência, embora não a zere. Por isso, corpos cetônicos são uma solução distributiva normal; tornam-se perigosos quando sua produção é descontrolada e ultrapassa consumo e tamponamento.
No estresse, a prioridade biológica é disponibilizar substrato rapidamente, não normalizar um exame. A mesma resposta que beneficia uma agressão breve pode se tornar deletéria quando intensa ou prolongada. Isso explica por que hiperglicemia, proteólise e lipólise acompanham doença crítica e por que o tratamento não deve tentar simplesmente reproduzir em todos os pacientes o metabolismo de uma pessoa saudável em repouso.
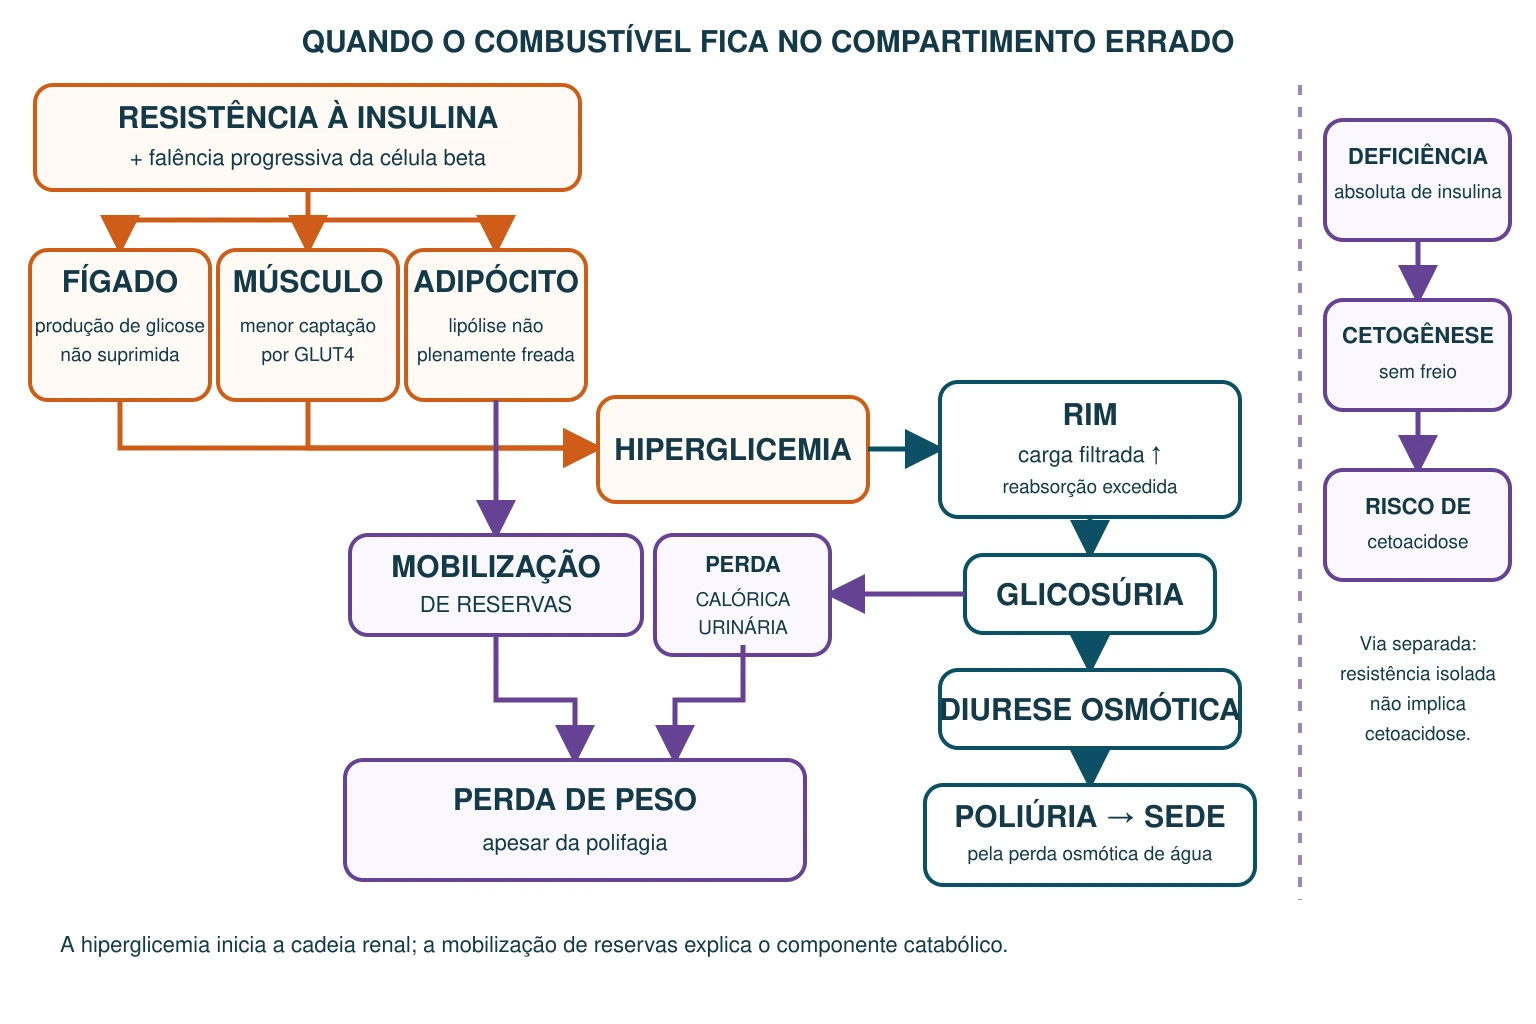
No caso de Aldo, o raciocínio começa antes do laboratório. Três meses de poliúria, polidipsia, noctúria, polifagia, emagrecimento, visão borrada e infecções recorrentes formam uma síndrome coerente. A avaliação clínica deve confirmar gravidade, hidratação, uso de medicamentos, consumo, história familiar e sinais de descompensação aguda. O diagnóstico e a classificação exigem critérios laboratoriais e contexto; este capítulo oferece o mecanismo que torna esses critérios inteligíveis.
A síntese útil cabe em quatro perguntas: qual é o estado temporal; qual é a relação entre sinais de abundância e escassez; qual órgão exporta ou capta o substrato; e qual célula tem uma restrição que não pode negociar. Quando essas perguntas são respondidas, dezenas de vias deixam de ser listas concorrentes e passam a formar uma única história fisiológica.
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Mudança de fonte no jejum | Síntese fisiológica de estudos metabólicos humanos e textos de referência. | A contribuição do glicogênio é mais importante cedo e a gliconeogênese cresce progressivamente; tempos são aproximações dependentes de reserva e demanda. | StatPearls. Physiology, Fasting. NCBI Bookshelf. |
| Insulina como freio metabólico | Revisão de fisiologia e bioquímica hormonal. | A insulina reduz produção hepática de glicose, lipólise e cetogênese, além de favorecer captação e armazenamento. | StatPearls. Biochemistry, Insulin Metabolic Effects. NCBI Bookshelf. |
| Contrarregulação no estresse | Revisão de resposta metabólica humana ao estresse. | Catecolaminas, cortisol, glucagon e hormônio do crescimento aumentam disponibilidade de substrato e resistência periférica à insulina. | National Academies. Metabolic Responses to Stress and Physical Activity. NCBI Bookshelf. |
| Integração clínica no diabetes | Consenso clínico e revisão fisiopatológica. | Produção hepática excessiva, captação periférica reduzida e lipólise inadequadamente suprimida coexistem na fisiopatologia. | American Diabetes Association. Standards of Care in Diabetes—2026. |
Esquemas e tabelas
O mesmo órgão muda de função conforme o estado; a restrição celular permanece.
| Estado | Sinal dominante | Fonte de glicose | Combustível alternativo |
|---|---|---|---|
| Alimentado | Insulina relativamente alta | Dieta | Oxidação e armazenamento de lipídios |
| Pós-absortivo | Queda da relação insulina/glucagon | Glicogênio + gliconeogênese | Ácidos graxos |
| Jejum prolongado | Insulina baixa + contrarregulação | Gliconeogênese | Ácidos graxos + corpos cetônicos |
| Estresse | Catecolaminas/cortisol/glucagon/GH | Produção hepática aumentada | Lipólise e proteólise |
Papéis por órgão
| Órgão | Alimentado | Jejum/estresse |
|---|---|---|
| Fígado | Armazena glicogênio e sintetiza lipídios | Exporta glicose e cetonas |
| Músculo | Capta glicose e repõe glicogênio | Usa reserva própria, ácidos graxos; exporta alanina/lactato |
| Adiposo | Armazena triacilglicerol | Libera ácidos graxos e glicerol |
| Cérebro | Usa glicose | Usa glicose e, progressivamente, cetonas |
| Hemácia | Usa glicose e produz lactato | Continua usando glicose e produzindo lactato |
Precursores da gliconeogênese
| Precursor | Origem | Destino |
|---|---|---|
| Lactato | Hemácias e músculo | Glicose pelo ciclo de Cori |
| Alanina | Músculo | Carbono para glicose; nitrogênio para ureia |
| Glicerol | Lipólise adiposa | Intermediário gliconeogênico |
| Acetil-CoA | Beta-oxidação | Energia e ativação; não fornece glicose líquida |
- As vias se sobrepõem; horários não são interruptores.
- Glucagon não deve ser apresentado como principal estímulo direto da lipólise adiposa humana.
- Deficiência absoluta de insulina e resistência à insulina têm consequências cetogênicas diferentes.
Onde se erra
- Chamar metabolismo de lista
- As vias só explicam o paciente quando são conectadas entre órgãos.
- Usar um interruptor binário
- Alimentado e jejum são extremos de uma transição contínua.
- Confundir sangue com célula
- Hiperglicemia pode coexistir com sinal celular de escassez.
- Fazer músculo exportar glicose
- Seu glicogênio abastece a própria fibra.
- Fazer gordura virar glicose
- Glicerol contribui; acetil-CoA de ácidos graxos pares não gera glicose líquida.
- Dar cetonas às hemácias
- Sem mitocôndria, elas permanecem glicolíticas.
- Fixar o jejum em 24 horas
- Reservas e demanda deslocam todas as fronteiras temporais.
- Atribuir lipólise ao glucagon
- Em humanos, baixa insulina e catecolaminas são centrais.
- Ignorar a contração
- Exercício recruta GLUT4 por via parcialmente independente da insulina.
- Igualar cetose a cetoacidose
- Produção fisiológica e descontrole ácido-base são fenômenos distintos.
- Diagnosticar pela refeição
- Diabetes não é explicado apenas pela ingestão de açúcar.
- Rotular estresse como diabetes
- Um valor agudo precisa de contexto e confirmação.
Roteiro do raciocínio
Reconstrua o estado metabólico antes de nomear a via.
- 01Definir tempo desde a refeição
- 02Estimar sinais hormonais
- 03Separar fígado, músculo e adiposo
- 04Preservar cérebro e hemácias
- 05Ordenar glicogênio e gliconeogênese
- 06Rastrear lactato, alanina e glicerol
- 07Conectar beta-oxidação e cetogênese
- 08Adicionar exercício ou estresse
- 09Explicar diurese osmótica
- 10Voltar à perda de peso e à fome
Teste-se
Leve para o paciente
Aldo, 52 anos, chega com sede, noctúria, fome aumentada, perda de seis quilos, visão borrada e candidíase recorrente. Agora é sua vez: organize a síndrome, avalie sinais de gravidade e explique por que há combustível sobrando no sangue e sendo perdido pelo corpo.
Revisão espaçada
Desenhe de memória os fluxos entre fígado, músculo, adiposo, cérebro e hemácia após uma refeição e no jejum.
Explique poliúria, sede e perda de peso de Aldo usando relação hormonal, compartimentos e destino do carbono.