
Função e Bases Moleculares › Defesa e tolerância: o hospedeiro produz o sinal, e cada modo de errar tem nome
A defesa precisa de endereço
Arquitetura da resposta imune: do reconhecimento à memória e tolerância
Como barreiras, imunidade inata, apresentação de antígeno, expansão clonal, efetores e tolerância formam uma resposta no tempo e no espaço
O caso
Um lactente é levado ao atendimento por infecções de repetição. A família descreve otites, pneumonias e candidíase persistente; os episódios parecem mais longos que os das outras crianças e a recuperação entre eles é incompleta. Em uma das pneumonias houve pouca febre e quase nenhuma secreção purulenta, apesar de extensa alteração radiológica. A ausência de inflamação exuberante foi inicialmente lida como ausência de gravidade.
Dizer que essa criança 'tem imunidade baixa' é insuficiente. A defesa não é uma força única que sobe ou desce. Ela é uma arquitetura: barreiras impedem entrada; sensores reconhecem padrões; complemento e células inatas contêm o agente; células dendríticas transportam informação ao linfonodo; clones raros de linfócitos expandem; efetores retornam ao tecido; mecanismos reguladores encerram a resposta e preservam memória.
O tipo de infecção, a idade de início, a localização, o microrganismo e a presença ou ausência de pus informam em qual andar essa arquitetura pode ter falhado. Defeito de neutrófilos não produz o mesmo padrão que falha de anticorpos. Perda de linfócitos T compromete cooperação, citotoxicidade e parte da resposta humoral. Complemento, baço, barreiras e fagócitos deixam assinaturas diferentes.
A resposta também precisa escolher o que não atacar. Os mesmos mecanismos capazes de ampliar um clone precisam excluir ou silenciar clones autorreativos, limitar dano colateral e contrair a população efetora quando o perigo termina. Tolerância não é ausência de defesa: é a propriedade que permite direcioná-la. Sem ativação, há infecção; sem freio, há imunopatologia.
Este capítulo não cataloga todas as células. Ele acompanha uma informação: do primeiro contato na barreira até memória e tolerância. A pergunta central é onde cada decisão acontece e quais sinais precisam coincidir para que uma resposta seja rápida, específica e proporcional sem transformar o próprio paciente em alvo.
O mecanismo
A primeira camada é física, química e ecológica. Epitélios, junções, muco, cílios, fluxo, pH, peptídeos antimicrobianos e microbiota reduzem a probabilidade de invasão. A barreira não é uma parede passiva: células epiteliais detectam dano e microrganismos, produzem citocinas e quimiocinas e convocam células do tecido e do sangue. Quando a barreira funciona, muitos encontros terminam sem inflamação sistêmica e sem expansão clonal.
A imunidade inata reconhece classes de perigo. Receptores de reconhecimento de padrão detectam estruturas microbianas conservadas — PAMPs — e sinais de dano celular — DAMPs. O reconhecimento ativa programas: inflamação, fagocitose, produção de interferons, recrutamento de neutrófilos e monócitos e amplificação pelo complemento. Essa resposta é rápida porque os receptores já estão codificados na linhagem germinativa e distribuídos em muitas células; não é preciso esperar que um clone raro se multiplique.
Complemento não é apenas uma cascata de lise. Fragmentos opsonizam superfícies, recrutam e ativam leucócitos e, em algumas condições, formam o complexo de ataque à membrana. Fagócitos reconhecem microrganismos diretamente e por opsoninas. Células NK avaliam o equilíbrio entre sinais ativadores e inibitórios e eliminam algumas células infectadas ou transformadas, especialmente quando a expressão normal de MHC I está reduzida.
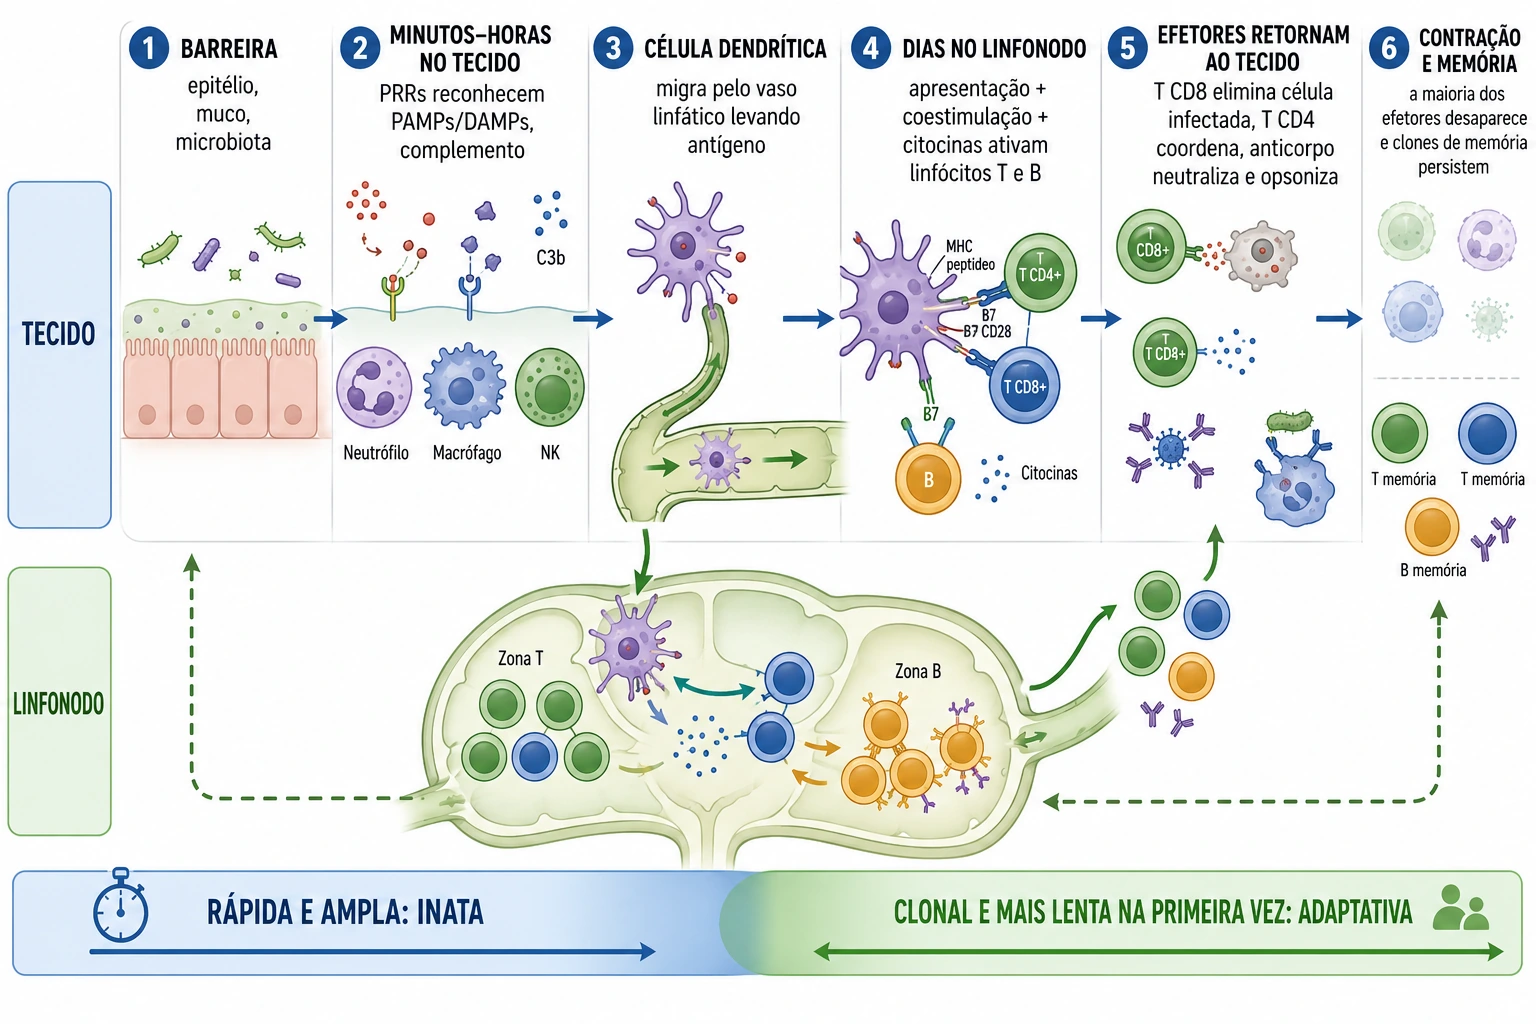
A imunidade adaptativa resolve um problema diferente: reconhecer detalhes moleculares com enorme diversidade e deixar populações clonais persistentes. Cada linfócito carrega um receptor gerado por recombinação somática. Antes do encontro, o clone específico é raro. Antígeno, coestimulação e contexto de citocinas selecionam e expandem clones adequados. A latência da primeira resposta nasce dessa logística; não é lentidão de uma célula individual, mas tempo para encontrar, decidir e multiplicar.
A célula dendrítica conecta dois endereços. No tecido, captura antígeno e recebe sinais de perigo. Depois migra ao linfonodo drenante, amadurece e apresenta peptídeos a linfócitos T virgens. Antígeno sem coestimulação adequada pode induzir não resposta ou tolerância; coestimulação sem especificidade não escolhe o clone. A qualidade da resposta depende ainda das citocinas, que informam o tipo de ameaça e orientam diferenciação.
Peptídeos citosólicos são geralmente apresentados em MHC I a linfócitos T CD8; peptídeos derivados de material endocitado são geralmente apresentados em MHC II a linfócitos T CD4. Todas as células nucleadas exibem MHC I, permitindo vigilância de infecção intracelular. Células apresentadoras profissionais exibem MHC II e coestimulação. Células dendríticas podem realizar apresentação cruzada, carregando antígeno extracelular para MHC I; a regra é organizadora, não absoluta.
T CD8 ativados tornam-se citotóxicos e eliminam células que exibem o peptídeo-alvo em MHC I. T CD4 coordenam outras células por contato e citocinas: ajudam macrófagos a destruir material fagocitado, sustentam ativação e diferenciação de linfócitos B e organizam respostas apropriadas ao agente. Subconjuntos não são rótulos decorativos; são programas funcionais moldados pelo contexto.
O receptor do linfócito B reconhece antígeno em sua forma nativa, não um peptídeo obrigatoriamente apresentado em MHC. Depois de capturá-lo, o B pode apresentar peptídeos em MHC II a T auxiliares. Em respostas dependentes de T, essa cooperação sustenta expansão, troca de classe, maturação de afinidade, células plasmáticas e memória. Anticorpos neutralizam toxinas e vírus, opsonizam alvos, ativam complemento e recrutam funções efetoras por sua região constante.
A especificidade pertence ao conjunto receptor–antígeno–contexto. Um anticorpo circulante não elimina todas as ameaças; um T CD8 não reconhece antígeno solúvel; um neutrófilo não cria memória clonal específica. A arquitetura funciona porque módulos distintos se sobrepõem. Redundância torna a defesa robusta, mas também significa que um defeito pode ser parcialmente mascarado até que um microrganismo ou idade revele a dependência daquele módulo.
Depois do controle, a maior parte da população efetora contrai. Citocinas de sobrevivência diminuem, estímulo antigênico cessa e mecanismos reguladores limitam a inflamação. Uma fração persiste como memória. Na reexposição, maior frequência de células específicas, localização favorável, estado epigenético e anticorpos preexistentes tornam a resposta mais rápida e eficaz. A imunidade inata também pode ser reprogramada por exposições prévias — a chamada imunidade treinada —, mas isso é amplo e não equivale à memória clonal altamente específica de T e B.
Tolerância começa antes da infecção. Durante o desenvolvimento, linfócitos fortemente autorreativos são eliminados, editados ou direcionados a programas reguladores. Como a seleção central não é perfeita, mecanismos periféricos completam o trabalho: ausência de coestimulação, anergia, deleção, células T reguladoras, receptores inibitórios e barreiras anatômicas. Autoimunidade pode surgir quando predisposição genética, dano tecidual e contexto inflamatório deslocam esse equilíbrio.
Ausência de pus ou febre não prova ausência de infecção. Pus depende do recrutamento e da morte de neutrófilos; febre depende de mediadores e capacidade de resposta. Neutropenia, defeito de migração, imunossupressão ou idade podem produzir infecção grave com inflamação discreta. No lactente da cena, o silêncio inflamatório é um dado positivo sobre a arquitetura, não um vazio de informação.
O que o mecanismo explica
Seis perguntas que localizam a resposta antes de nomear a doença.
“Por que a resposta inata começa em minutos?”
Seus receptores já estão disponíveis em muitas células e reconhecem classes de perigo sem expansão clonal prévia.
“Por que a primeira resposta adaptativa demora dias?”
Clones raros precisam encontrar antígeno no órgão linfoide, receber sinais adequados, proliferar e diferenciar.
“Por que a célula dendrítica é uma ponte?”
Ela combina informação do tecido com apresentação e coestimulação no linfonodo.
“O que MHC I e II distribuem?”
MHC I organiza vigilância por CD8 de antígenos citosólicos; MHC II organiza cooperação por CD4 com material endocitado.
“Por que anticorpo baixo não é sinônimo de memória ausente?”
Anticorpo circulante é produto; memória é uma população capaz de responder ao reencontro.
“Por que pouca inflamação pode preocupar?”
A formação de pus e febre exige efetores; sua ausência pode revelar falha da resposta, não doença leve.
Como se orientar
- Começar pelo endereço
- Barreira, tecido, sangue, linfonodo e medula abrigam decisões diferentes.
- Separar velocidade de especificidade
- Inata é pronta e ampla; adaptativa seleciona e expande clones.
- Exigir sinais coincidentes
- Antígeno, coestimulação e contexto evitam ativação fora de lugar.
- Ligar reconhecimento a função
- CD8 elimina, CD4 coordena, B produz anticorpo; fagócitos e complemento executam.
- Observar a contração
- Uma resposta saudável também precisa terminar.
- Preservar tolerância
- Freios centrais e periféricos direcionam a potência contra o alvo correto.
- Ler o padrão clínico
- Agente, local, idade, frequência e qualidade da inflamação apontam o módulo defeituoso.
O raciocínio
Siga o antígeno do ponto de entrada ao órgão linfoide e acompanhe quem volta ao tecido.
- 1
Definir a porta de entrada
Pele, mucosa respiratória e intestino oferecem barreiras especializadas.
Erro comum: Começar diretamente pelo anticorpo.
- 2
Reconhecer a quebra da barreira
Dano e padrões microbianos ativam epitélio e sentinelas residentes.
Erro comum: Tratar epitélio como parede inerte.
- 3
Ativar a contenção inata
Complemento, fagócitos, interferons e NK limitam a expansão inicial.
Erro comum: Chamar inata de inespecífica e desorganizada.
- 4
Recrutar do sangue
Quimiocinas e endotélio ativado guiam neutrófilos e monócitos.
Erro comum: Supor que pus aparece sem recrutamento celular.
- 5
Transportar informação
Dendríticas migram ao linfonodo com antígeno e contexto de perigo.
Erro comum: Imaginar que o linfócito virgem patrulha todos os tecidos.
- 6
Exigir três dimensões do sinal
Reconhecimento, coestimulação e citocinas selecionam o programa.
Erro comum: Ativar clone apenas porque o antígeno existe.
- 7
Escolher MHC I ou II
Origem e processamento do peptídeo direcionam CD8 ou CD4.
Erro comum: Aplicar a regra como absoluta e esquecer apresentação cruzada.
- 8
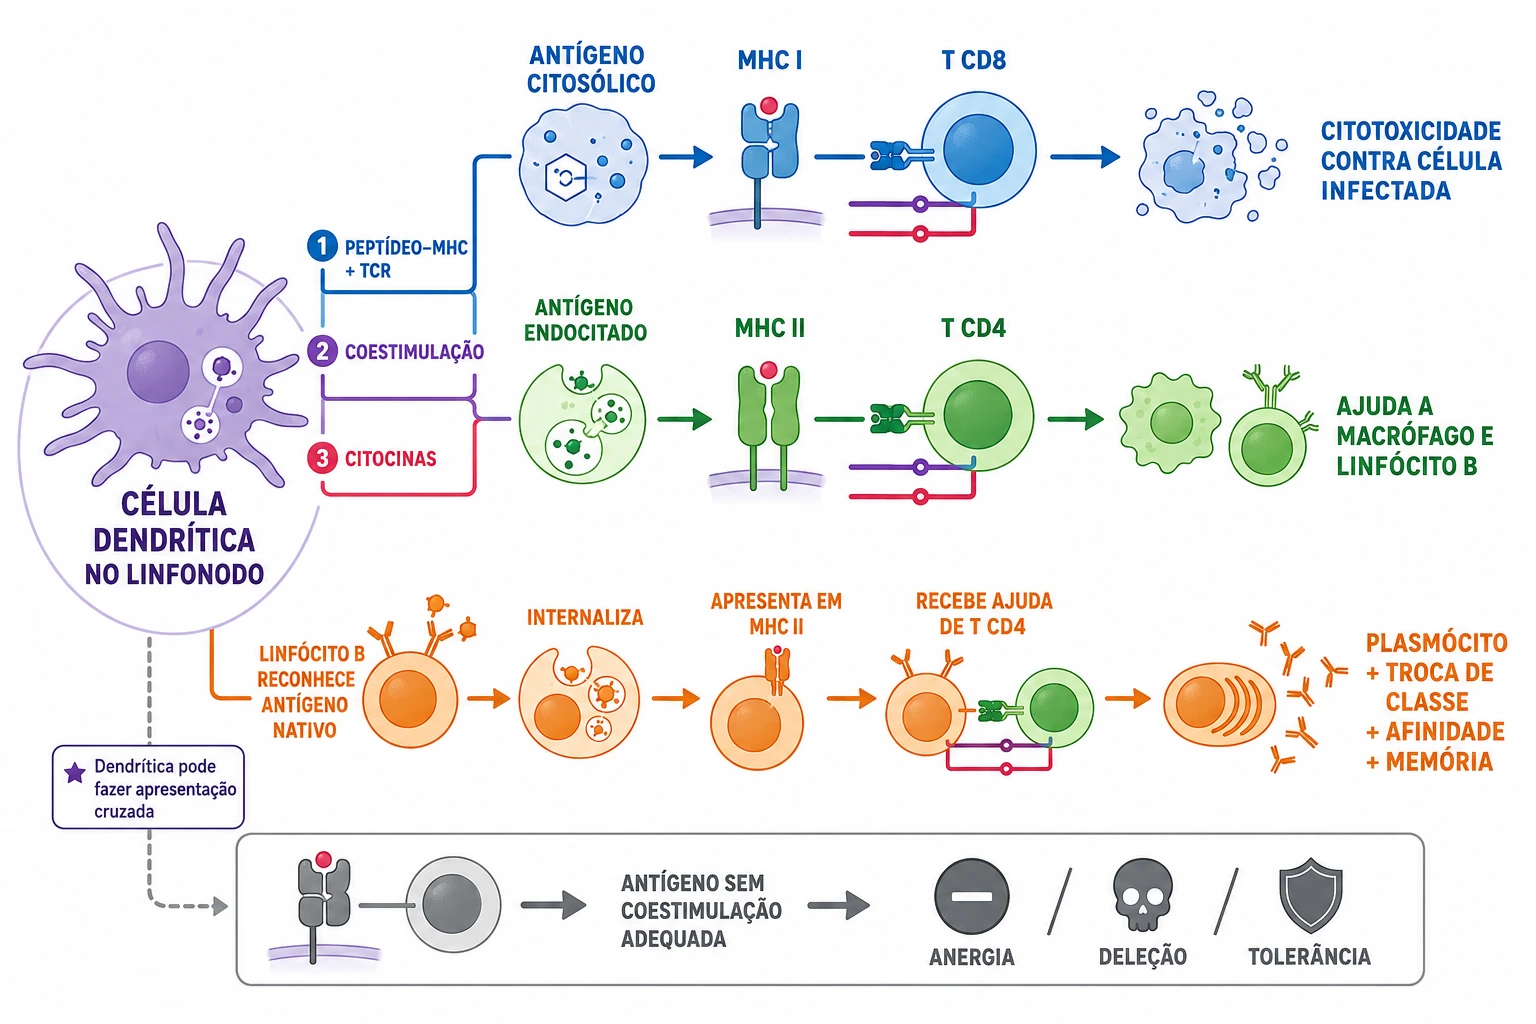
Especificidade não basta: localização, coestimulação e contexto decidem entre resposta efetora e tolerância. - 8
Expandir o clone
Células específicas proliferam e diferenciam em efetoras.
Erro comum: Explicar a latência como falta de reconhecimento.
- 9
Enviar efetores ao endereço
T ativados retornam ao tecido; plasmócitos secretam anticorpos distribuídos pelo corpo.
Erro comum: Encerrar a história no linfonodo.
- 10
Executar funções distintas
CD8 mata células-alvo, CD4 coordena e anticorpos neutralizam e opsonizam.
Erro comum: Tratar todos os efetores como intercambiáveis.
- 11
Contrair a resposta
Retirada do antígeno e sinais reguladores reduzem a população efetora.
Erro comum: Confundir resposta maior com resposta sempre melhor.
- 12
Guardar memória
Clones persistentes e anticorpos preexistentes aceleram a reexposição.
Erro comum: Reduzir memória ao título sérico do dia.
- 13
Aplicar tolerância central
Seleção no timo e medula remove ou edita parte da autorreatividade.
Erro comum: Esperar seleção central perfeita.
- 14
Aplicar tolerância periférica
Anergia, deleção, T reguladoras e freios inibitórios controlam escapes.
Erro comum: Definir tolerância como fraqueza imune.
- 15
Ler o tipo de infecção
Bactéria encapsulada, fungo, vírus ou agente oportunista apontam módulos diferentes.
Erro comum: Agrupar todas as infecções recorrentes sob um único rótulo.
- 16
Ler a inflamação ausente
Pouco pus pode indicar neutropenia ou falha de recrutamento.
Erro comum: Usar pouca febre para tranquilizar automaticamente.
- 17
Fechar no tempo e no espaço
Nomeie onde a resposta deveria estar em cada momento e qual transição falhou.
Erro comum: Recitar células sem localizar decisões.
Esperado e alterado
- Barreiras contendo a maioria das exposições sem resposta sistêmica.
- Reconhecimento inato e recrutamento nas primeiras horas.
- Migração dendrítica ao linfonodo e expansão clonal ao longo de dias.
- Efetores retornando ao tecido e anticorpos alcançando superfícies e sangue.
- Contração após controle com preservação de memória.
- Ausência de resposta contra tecidos próprios apesar de repertório diverso.
- Infecções bacterianas recorrentes sem pus
- Investigar número, migração e função de neutrófilos.
- Infecções por organismos oportunistas precoces
- Pista para comprometimento de imunidade celular ou combinado.
- Infecções por bactérias encapsuladas
- Pode indicar deficiência de anticorpos, complemento ou função esplênica.
- Infecções recorrentes por Neisseria
- Padrão clássico que orienta avaliação da via terminal do complemento.
- Candidíase persistente
- Sugere avaliar eixo de células T e outras condições predisponentes no contexto.
- Resposta sem coestimulação
- Pode favorecer anergia ou tolerância em vez de expansão efetora.
- Inflamação que não contrai
- Risco de dano tecidual e imunopatologia persistente.
- Perda de tolerância
- Ativação de clones autorreativos por falha combinada de seleção e freios periféricos.
Por que isso importa
A arquitetura resolve uma aparente contradição: a resposta precisa ser rápida antes de conhecer detalhadamente o invasor e específica antes de causar dano excessivo. A imunidade inata compra tempo e fornece contexto. A adaptativa amplifica clones com receptores adequados. Tolerância e contração limitam o preço dessa potência. Nenhuma dessas camadas substitui as outras.
O tempo da resposta é consequência do mecanismo. Barreiras e receptores inatos já existem; por isso atuam em minutos. Linfócitos específicos também já existem, mas são raros, circulam por órgãos linfoides e precisam proliferar; por isso a primeira resposta adaptativa leva dias. Na reexposição, clones de memória mais numerosos e preparados encurtam a latência. Essa diferença sustenta vacinação sem exigir que o anticorpo permaneça para sempre em concentração alta.
O espaço é igualmente importante. Antígeno no tecido não encontra ao acaso todos os linfócitos virgens. Dendríticas levam uma amostra ao linfonodo que drena aquele território. Ali, a organização anatômica aumenta a probabilidade de encontro entre clones raros, células apresentadoras e linfócitos B. Depois, moléculas de adesão e quimiocinas devolvem efetores ao endereço inflamado. A defesa é uma cadeia logística.
A divisão MHC I–CD8 e MHC II–CD4 transforma a origem do antígeno em uma decisão funcional. Célula infectada precisa ser examinada por dentro e eliminada; material capturado do exterior pede coordenação, fagocitose e anticorpo. A apresentação cruzada impede que essa divisão seja uma camisa de força, permitindo que dendríticas iniciem CD8 mesmo sem estar produtivamente infectadas.
O linfócito B acrescenta outro modo de reconhecimento. Seu receptor vê forma, superfície e repetição no antígeno nativo. O T vê peptídeo no MHC. A cooperação entre essas duas leituras seleciona B que capturou o alvo correto e oferece ajuda para troca de classe e maturação de afinidade. Assim, a resposta aumenta não apenas em quantidade, mas em qualidade e função efetora.
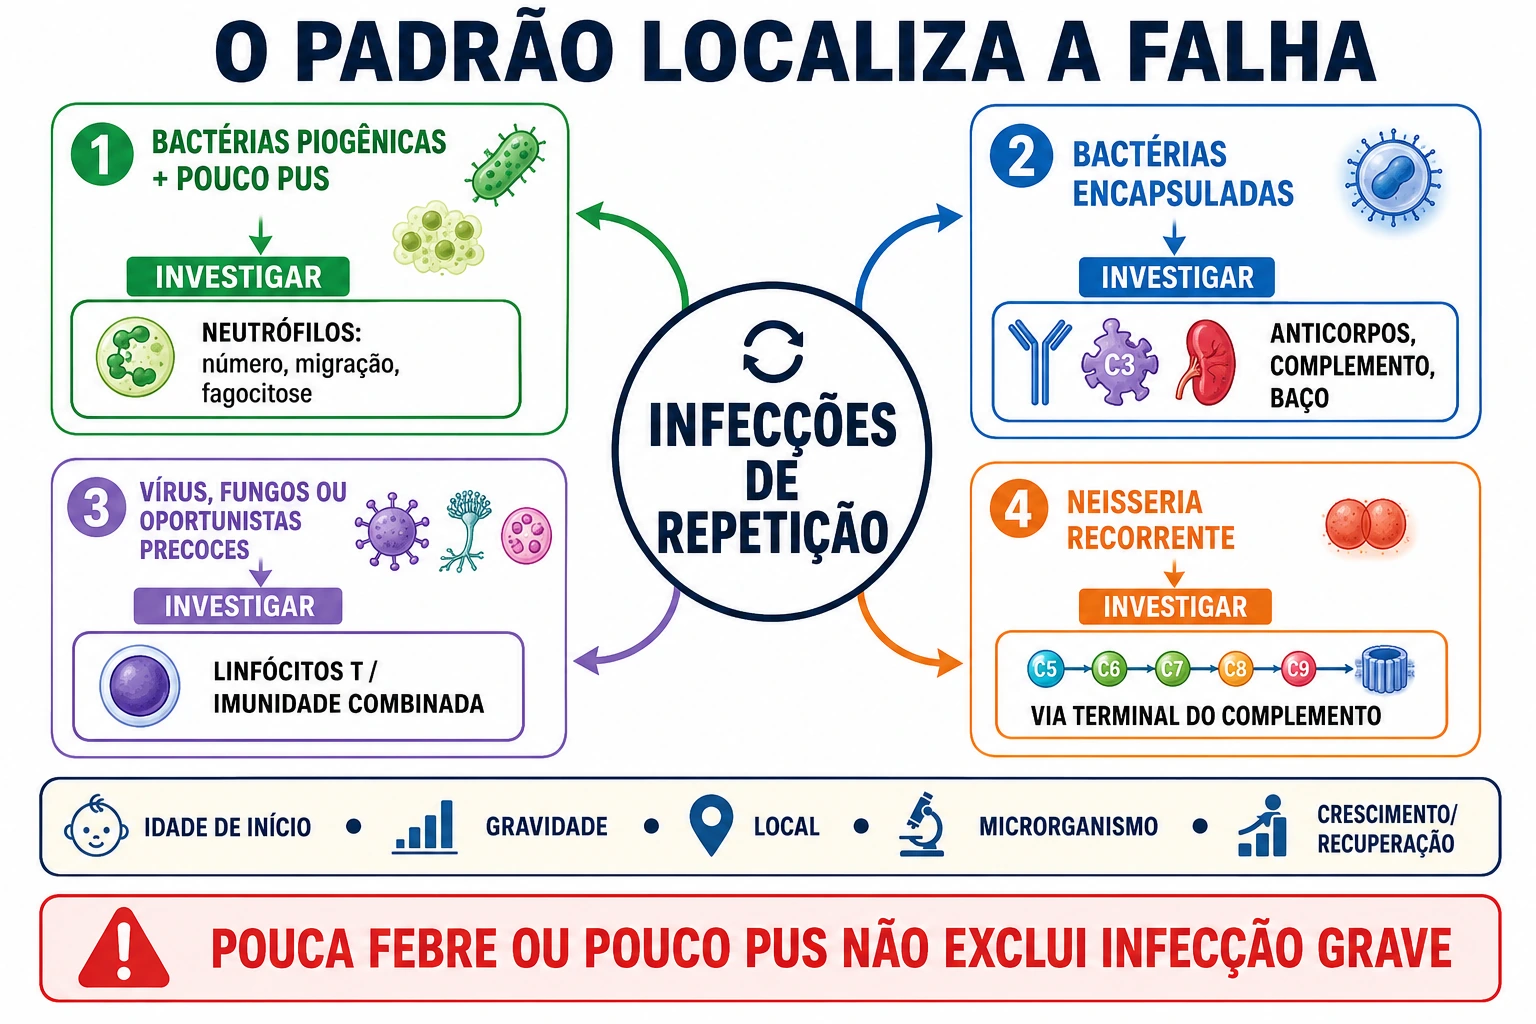
A tolerância mostra por que ativação requer mais de um sinal. Um receptor autorreativo pode encontrar antígeno próprio sem contexto de perigo e tornar-se anérgico; células reguladoras e receptores inibitórios reforçam o freio. Em inflamação intensa, dano libera novos antígenos e altera coestimulação, aumentando o risco de quebra de tolerância. A mesma arquitetura que combate infecção também contém a explicação para autoimunidade e imunopatologia.
No lactente, o exame precisa ser guiado pelo fenótipo, não por uma lista indiscriminada. Confirmar frequência e documentação dos episódios, crescimento, resposta a antibióticos, complicações, histórico familiar, consanguinidade, vacinação, exposições e uso de fármacos. Hemograma com diferencial, imunoglobulinas e testes complementares são escolhidos conforme idade e padrão, com encaminhamento oportuno quando há sinais de alarme.
A mensagem final é operacional: pergunte onde o invasor está, quem o reconhece primeiro, como a informação chega ao linfonodo, qual efetor volta ao tecido e qual freio encerra a resposta. Quando uma dessas transições falha, o tipo de infecção e a qualidade da inflamação revelam o endereço provável.
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Inata e adaptativa cooperam | Revisões integrativas de imunologia humana. | A resposta inata contém o agente e fornece sinais que direcionam expansão e função adaptativas. | Chaplin DD. Overview of the immune response. J Allergy Clin Immunol. 2010. |
| Apresentação e coestimulação | Síntese mecanística de imunobiologia. | Reconhecimento de peptídeo–MHC sem sinais acessórios adequados não produz automaticamente resposta efetora. | Janeway's Immunobiology. Principles of innate and adaptive immunity. NCBI Bookshelf. |
| Memória adaptativa | Revisão de fisiologia imune. | Expansão clonal e persistência de populações específicas tornam a resposta secundária mais rápida e robusta. | StatPearls. Physiology, Immune Response. NCBI Bookshelf. |
| Memória inata treinada | Revisão mecanística contemporânea. | Reprogramação inata após exposições existe, mas é ampla e mecanisticamente distinta da memória clonal de T e B. | Netea MG et al. Trained innate immunity. Nat Rev Immunol. |
Esquemas e tabelas
A pergunta correta combina camada, endereço, tempo e função.
| Camada | Tempo típico | Reconhecimento | Função |
|---|---|---|---|
| Barreira | Contínuo | Contato/dano | Impedir entrada |
| Inata | Minutos–horas | PAMPs/DAMPs e opsoninas | Conter, inflamar e informar |
| Adaptativa primária | Dias | Receptor clonal + contexto | Expandir efetores específicos |
| Memória | Reexposição | Clone persistente | Responder mais rápido e melhor |
Apresentação e função
| Rota | Reconhecimento | Saída principal |
|---|---|---|
| MHC I → CD8 | Peptídeos geralmente citosólicos | Morte de célula infectada |
| MHC II → CD4 | Peptídeos geralmente endocitados | Coordenação, ajuda a macrófagos e B |
| BCR | Antígeno nativo | Anticorpo, plasmócito e memória |
Freios de tolerância
| Local | Mecanismos |
|---|---|
| Central | Deleção, edição de receptor e diferenciação reguladora |
| Periférico | Anergia, deleção, T reguladoras e receptores inibitórios |
| Após resposta | Contração e resolução da inflamação |
- Os tempos se sobrepõem e variam com agente, dose, tecido e hospedeiro.
- MHC I e II são regras organizadoras com exceções como apresentação cruzada.
- Associações clínicas orientam investigação; não substituem confirmação diagnóstica.
Onde se erra
- Chamar inata de inespecífica
- Ela reconhece padrões definidos e produz respostas contextuais.
- Chamar adaptativa de lenta
- A latência nasce do encontro e da expansão de clones raros.
- Esquecer a barreira
- A maior parte das exposições termina antes da inflamação sistêmica.
- Parar no linfonodo
- Efetores precisam retornar ao tecido ou secretar produtos que o alcancem.
- Ativar com um único sinal
- Antígeno, coestimulação e contexto constroem a decisão.
- Inverter MHC
- MHC I organiza CD8; MHC II organiza CD4, com exceções explicitadas.
- Fazer B reconhecer só peptídeo
- O BCR reconhece antígeno nativo; depois o B apresenta peptídeo a T.
- Confundir anticorpo e memória
- Produto circulante e população capaz de responder são medidas diferentes.
- Definir tolerância como fraqueza
- Ela direciona a potência e evita autorreatividade.
- Esquecer a contração
- Uma resposta que não termina também adoece.
- Chamar treino inato de memória clonal
- Os fenômenos têm especificidade e mecanismos distintos.
- Tranquilizar pela falta de pus
- Ausência de efetor pode silenciar justamente uma infecção grave.
- Pedir tudo sem fenótipo
- O padrão clínico deve escolher a investigação inicial.
Roteiro do raciocínio
Siga informação, células e freios no tempo e no espaço.
- 01Localizar a barreira
- 02Reconhecer PAMPs e DAMPs
- 03Conter com efetores inatos
- 04Migrar informação ao linfonodo
- 05Exigir antígeno, coestimulação e contexto
- 06Distribuir MHC I, MHC II e BCR
- 07Expandir clones
- 08Retornar efetores ao tecido
- 09Contrair a resposta
- 10Preservar memória
- 11Aplicar tolerância central e periférica
- 12Ler o padrão de infecção do lactente
Teste-se
Leve para o paciente
Um lactente chega com pneumonias, otites e candidíase de repetição, recuperação incompleta e inflamação surpreendentemente discreta. Agora é sua vez: construa o fenótipo infeccioso, procure sinais de alarme e escolha quais andares da arquitetura imune investigar primeiro.
Revisão espaçada
Desenhe o caminho de um antígeno respiratório do epitélio ao linfonodo e de volta ao tecido.
Explique como antígeno, coestimulação e contexto escolhem entre CD8, CD4, B, memória ou tolerância e aplique ao lactente sem pus.