
Função e Bases Moleculares › Do gene à proteína: informação, dobramento e destino
Transcrição e splicing
A triagem define quando nós sabemos, não quando a doença começou
O caso
Lactente hipotônico, sem sustento cefálico, com fasciculação de língua. O motoneurônio está morrendo. A doença é recessiva: o gene principal está inativo nas duas cópias. Não há como consertá-lo. Mas existe, ao lado dele, um segundo gene quase idêntico — uma cópia de reserva que todo mundo tem.
Ele funciona. Só que quase não produz. O motivo é minúsculo: uma única letra de diferença, que não muda o significado do trecho onde está. Ela deveria ser irrelevante. E não é. Essa letra altera a maneira como o rascunho do RNA é recortado — e faz com que um pedaço inteiro seja descartado na montagem final.
Sem esse pedaço, a proteína sai truncada e instável. O gene de reserva transcreve normalmente, monta errado e entrega quase nada de útil. Agora a parte que muda a lógica do tratamento. Descobriu-se que, logo adiante do trecho descartado, existe um freio — uma região do próprio RNA que exerce forte efeito inibitório sobre a inclusão daquele pedaço.
Se alguém cobrir esse freio, o pedaço volta a ser incluído. É exatamente isso que uma molécula sintética faz: ela gruda ali e nada mais. Não corrige o gene doente. Não repõe a proteína. Não entrega material novo. Ela reprograma a leitura de um gene que sempre esteve lá.
E funciona: lactentes passaram a alcançar marcos do desenvolvimento antes inatingíveis e a sobreviver além da primeira infância. Mas há um limite que nenhuma dose resolve, e ele é o assunto deste capítulo. Nas formas graves de início precoce, a perda de motoneurônios começa ainda intraútero — e dano irreversível pode ocorrer antes do início do tratamento. A triagem neonatal universal identifica no primeiro dia de vida. A doença começou antes disso.
O mecanismo
Comece por um fato que costuma ser ensinado como curiosidade e é, na verdade, a arquitetura central do genoma humano. O gene não é um texto contínuo. Ele é escrito com trechos que entram na versão final intercalados por trechos que não entram.
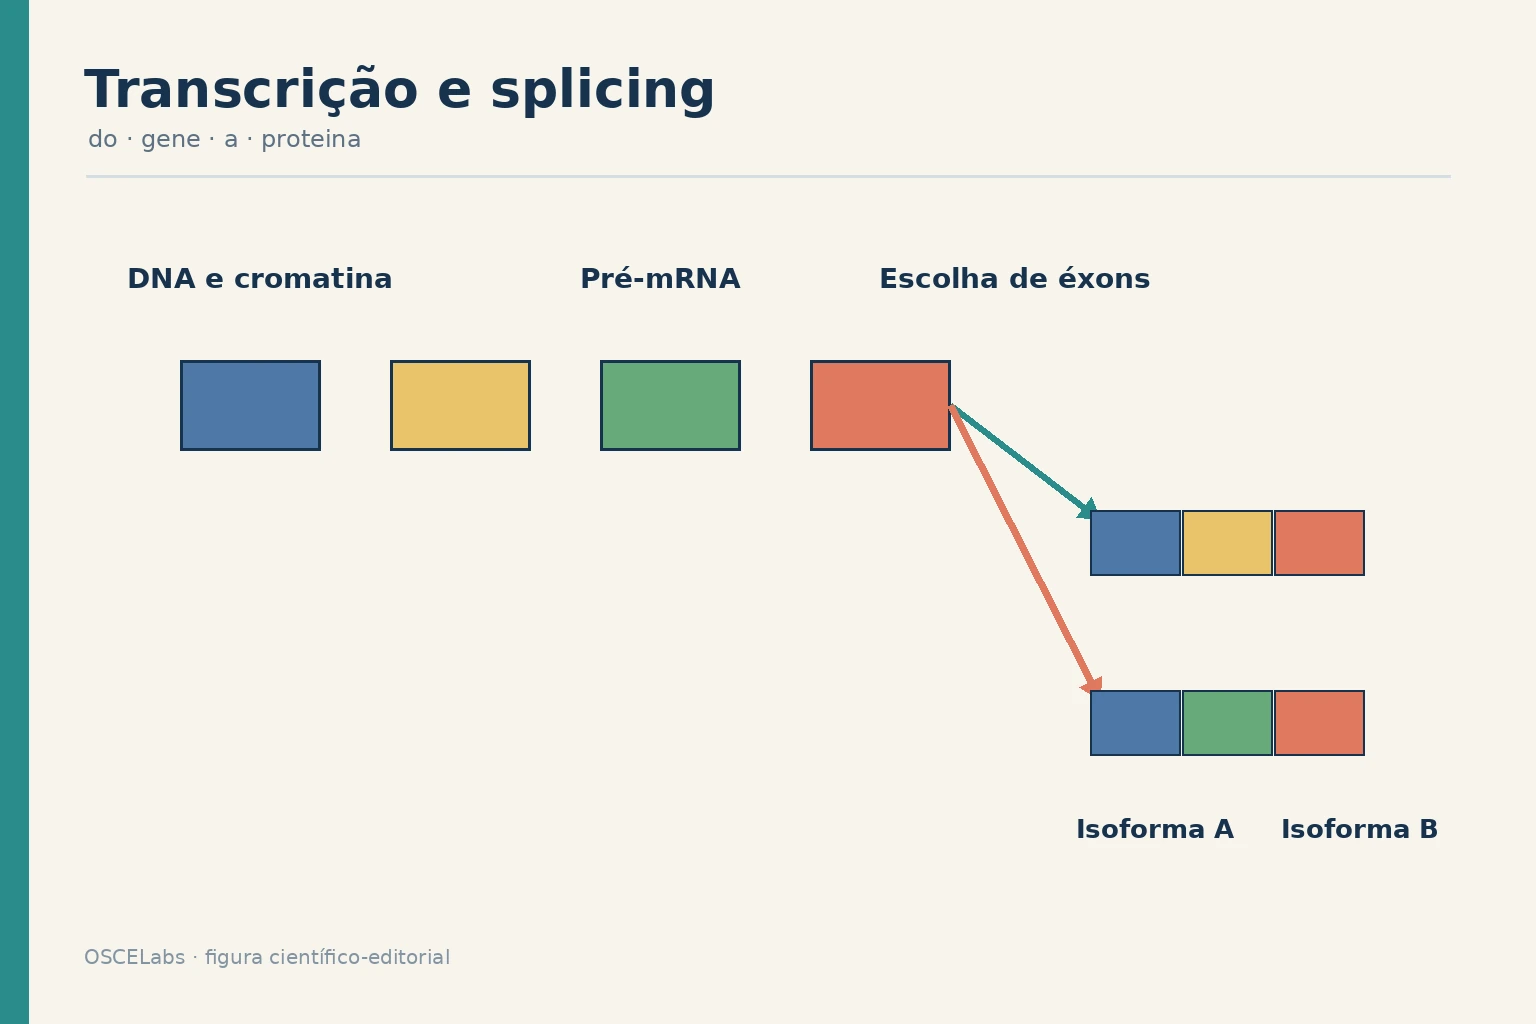
A célula transcreve tudo — o texto inteiro, com as partes que servem e as que não servem — e depois recorta e emenda o rascunho, descartando os intervalos e colando as partes úteis numa sequência contínua.
Esse recorte é o splicing. E ele não é detalhe de acabamento: é uma etapa de decisão. Repare por que isso é engenhoso. Se o recorte pode variar, o mesmo gene produz proteínas diferentes. Incluir um trecho aqui, pular outro ali — e sai uma proteína com propriedades distintas, a partir da mesma sequência de DNA.
É assim que um número modesto de genes produz um repertório muito maior de proteínas. O genoma não guarda uma proteína por gene: guarda instruções montáveis de mais de um jeito. Agora, como a máquina de recorte sabe onde cortar?
Ela reconhece sinais na própria sequência do rascunho: marcas curtas no início e no fim de cada trecho a ser removido, mais uma coleção de sinais auxiliares espalhados por dentro e por fora — alguns dizendo "inclua este trecho", outros dizendo "pule este trecho".
A decisão de incluir ou pular é o saldo dessas vozes. Não é uma regra rígida; é uma votação. Guarde essa imagem, porque ela explica tudo o que vem depois. Um trecho é incluído quando os sinais de inclusão vencem, e pulado quando os de exclusão vencem.
E daí decorre a consequência que dá título ao capítulo: uma única letra pode reescrever a proteína inteira. Se essa letra estiver num sinal de reconhecimento, ou num sinal auxiliar, ela muda o resultado da votação — e o trecho inteiro passa a ser incluído ou excluído.
A alteração é de uma letra; o efeito é de dezenas ou centenas. Retirar um trecho inteiro pode deslocar toda a leitura seguinte, produzindo uma proteína que não se parece em nada com a original.
É por isso que a gravidade de uma alteração não se estima pelo seu tamanho. Uma troca minúscula num sinal de splicing pode ser devastadora, e uma alteração maior em região sem função pode não fazer nada.
Há um caso especialmente elegante disso, e é o do lactente da cena. A letra alterada não muda o significado do trecho onde está. Pela regra de tradução, aquele pedaço continuaria codificando a mesma coisa. Pela regra de recorte, ele deixou de ser incluído.
A mesma letra é silenciosa numa camada e catastrófica na outra. É a demonstração mais limpa de que a informação genética é lida por mais de um código ao mesmo tempo — e uma alteração pode respeitar um e violar outro.
Agora o desenho terapêutico, que é o mais bonito deste capítulo. O gene principal está perdido nas duas cópias. Repor a proteína seria difícil; corrigir o gene, mais ainda. Mas existe um gene de reserva quase idêntico, cujo transcrito completo codifica uma proteína essencial de manutenção celular, com papel proeminente no metabolismo de RNA. Ele funciona — apenas produz pouco, porque o trecho crítico é predominantemente excluído.
A pergunta muda de "como consertar o que está quebrado" para "como fazer render o que está intacto". E a resposta veio de mapear a votação. Descobriu-se que, logo adiante do trecho excluído, há um silenciador que exercia forte efeito inibitório sobre a inclusão daquele éxon.
Uma molécula sintética foi desenhada para grudar exatamente ali. Ela não corta, não corrige, não substitui. Ela ocupa o lugar onde o freio seria lido — e o freio deixa de contar na votação. Silenciar o silenciador. O trecho volta a ser incluído, o transcrito completo aparece, e a proteína essencial é produzida a partir de um gene que o paciente sempre teve.
Os autores atribuem o sucesso, ao menos em parte, à acessibilidade desse silenciador — ou seja, a estratégia funcionou porque o alvo era alcançável, e não apenas porque a ideia era boa. Isso é uma advertência embutida: a mesma lógica não se transporta automaticamente para outro gene cujo ponto de controle não seja acessível.
O resultado clínico é real e grande: lactentes passaram a alcançar marcos do desenvolvimento antes inatingíveis e a sobreviver além da primeira infância. Hoje há também reposição gênica intravenosa em dose única por vetor viral e um agente oral que modifica o mesmo splicing.
Agora o limite — e é aqui que o capítulo vira uma lição de método. A triagem neonatal universal e a triagem pré-concepcional de portadores permitem identificação precoce e tratamento pós-natal imediato. "Imediato" é o melhor que um programa de triagem pode oferecer: tratar no primeiro dia de vida.
Só que, nas formas graves de início precoce, a perda de motoneurônios começa ainda intraútero, e dano irreversível pode ocorrer antes do início do tratamento. Leia devagar. O relógio da doença partiu antes do relógio do diagnóstico. Não por atraso do serviço, não por falha do exame, não por demora dos pais: por construção do programa.
Uma triagem neonatal não pode, por definição, detectar antes do nascimento. O ponto de partida dela é um evento do calendário, não um evento da biologia. E é por isso que terapias fetais são foco de pesquisa em andamento — a única maneira de mover o relógio do tratamento para antes do parto é mover também o momento do diagnóstico.
Aqui está a lição, e vale generalizar com cuidado. Todo programa de detecção define quando nós sabemos. Ele não define quando a doença começou. Entre os dois momentos existe um intervalo, e nesse intervalo o dano acumula sem que ninguém esteja errado.
A consequência é dura e frequentemente ignorada: esse intervalo impõe um teto ao benefício de qualquer tratamento, por melhor que ele seja. Nenhuma eficácia recupera o que já foi perdido antes de a doença ser conhecida.
Um tratamento pode ser excelente e ainda assim entregar menos do que promete — porque chegou depois de um dano que o programa de detecção não tinha como evitar. Distinga isso de outra ideia parecida. Não é a dependência contínua do tempo, como no tecido isquêmico em que cada minuto perdido é tecido perdido. Ali o relógio é de resposta.
Aqui o relógio é estrutural: o programa começa a contar num ponto fixo, e a doença começou antes desse ponto. Correr mais depressa dentro do programa não resolve; é preciso mudar onde o programa começa.
E há um erro de leitura que essa distinção previne, e ele aparece na avaliação de qualquer triagem: atribuir ao tratamento um resultado que é, em parte, do momento em que se passou a olhar. Antecipar a detecção melhora os números mesmo quando o tratamento é o mesmo, porque muda a população tratada e o ponto de partida da contagem.
Falta um último ponto, que é uma cortesia intelectual com o leitor: terapias novas revelam achados novos, e nem todo achado novo tem significado conhecido. Em pacientes sob terapia intratecal com essas moléculas, descreveram-se inclusões macrofágicas no líquido cefalorraquidiano. Num estudo retrospectivo e transversal com 21 pacientes e 132 amostras — seis em um esquema a cada quatro semanas e quinze em outro a cada quatro meses —, analisaram-se presença, momento de aparecimento e persistência dessas inclusões, além de biomarcadores inflamatórios do líquido, ferritina sérica e cadeia leve de neurofilamento em 18 pacientes ainda em tratamento.
E a conclusão honesta dos autores: esses achados permanecem pouco caracterizados e seu significado clínico não está claro. Registre a estrutura disso: o achado só existe porque a terapia existe, e ele apareceu antes de qualquer interpretação. Os autores também registram, na mesma linha, que limitações da terapia baseada em oligonucleotídeos continuam a emergir e que informações obtidas dos efeitos fora do alvo podem orientar a próxima geração.
Achado de significado incerto não é motivo para alarme nem para descarte. É motivo para medir. O antídoto tem três perguntas. Primeira: quando este programa começa a contar, e quando a doença começa? A diferença é o intervalo de dano inevitável.
Segunda: o ganho que estou vendo é do tratamento ou de ter passado a olhar mais cedo? São coisas diferentes e se somam no mesmo número. Terceira: para mover o resultado, preciso de mais eficácia ou de outro ponto de partida? Só a segunda muda um teto estrutural. A pergunta que fica: este tratamento chegou tarde, ou o nosso relógio é que começou tarde?
A quantidade final de RNA não depende apenas de ligar ou desligar um promotor. Enhancers, repressores, estado da cromatina, disponibilidade de fatores de transcrição, estabilidade do RNA e escolha de éxons regulam onde, quando e quanto um gene é expresso. O splicing alternativo permite que o mesmo locus produza isoformas diferentes, mas seu efeito depende do tecido e da fase do desenvolvimento. Uma variante pode, portanto, alterar expressão ou processamento sem mudar diretamente a sequência de aminoácidos.
O que o mecanismo explica
Seis perguntas que separam o relógio da doença do relógio do diagnóstico.
“Por que uma letra silenciosa pode ser devastadora?”
Ela pode ser silenciosa pela regra de tradução e decisiva pela regra de recorte.
“Por que a gravidade não se estima pelo tamanho da alteração?”
Uma troca minúscula num sinal de splicing exclui um trecho inteiro e desloca a leitura seguinte.
“Por que tratar o gene de reserva e não o gene doente?”
O de reserva funciona e apenas produz pouco: a pergunta vira como fazer render o que está intacto.
“O que a molécula sintética faz exatamente?”
Gruda sobre o silenciador; o freio deixa de contar na votação e o trecho volta a ser incluído.
“Quando a doença começou?”
Nas formas graves de início precoce, a perda de motoneurônios começa ainda intraútero.
“Quando o programa de triagem começa a contar?”
No nascimento — e por definição não detecta antes disso.
Como se orientar
- Abandonar o gene como texto contínuo
- Ele tem trechos que entram e trechos que não entram na versão final.
- Ver o recorte como decisão
- O mesmo gene monta proteínas diferentes conforme o que é incluído.
- Pensar a inclusão como votação
- Sinais de inclusão e de exclusão somam-se, e vence o saldo.
- Desacoplar tamanho de gravidade
- Uma letra num sinal de recorte muda dezenas ou centenas.
- Reconhecer os dois códigos
- A mesma alteração pode respeitar a tradução e violar o recorte.
- Trocar consertar por fazer render
- Um gene de reserva intacto pode ser reprogramado em vez de substituído.
- Separar os dois relógios
- Quando a doença começa e quando o programa passa a olhar.
O raciocínio
Do recorte como votação à triagem que começa a contar depois da doença.
- 1
Desfazer a ideia de texto contínuo
O gene tem trechos que entram na versão final intercalados por trechos que não entram.
Erro comum: Imaginar o gene como sequência ininterrupta que codifica a proteína.
- 2
Transcrever tudo e recortar depois
A célula copia o texto inteiro e só então descarta os intervalos e cola as partes úteis.
Erro comum: Supor que só as partes úteis são transcritas.
- 3
Elevar o recorte a etapa de decisão
Se o recorte pode variar, o mesmo gene produz proteínas diferentes.
Erro comum: Tratar o splicing como detalhe de acabamento.
- 4
Explicar o repertório
O genoma não guarda uma proteína por gene: guarda instruções montáveis de mais de um jeito.
Erro comum: Contar proteínas pelo número de genes.
- 5
Descrever como a máquina decide
Ela reconhece marcas curtas de início e fim mais sinais auxiliares que dizem inclua ou pule.
Erro comum: Procurar uma regra rígida de corte.
- 6
Formular a votação
A decisão de incluir ou pular é o saldo dessas vozes.
Erro comum: Supor que um único sinal determina o resultado.
- 7
Derivar o efeito de uma letra
Uma letra num sinal muda o resultado da votação, e o trecho inteiro passa a ser incluído ou excluído.
Erro comum: Estimar gravidade pelo tamanho da alteração.
- 8
Somar o deslocamento de leitura
Retirar um trecho inteiro pode deslocar toda a leitura seguinte, produzindo proteína que não se parece com a original.
Erro comum: Prever perda proporcional ao trecho perdido.
- 9
Reconhecer os dois códigos
A letra do caso não muda o significado do trecho pela regra de tradução e o retira pela regra de recorte.
Erro comum: Classificar uma alteração como inócua olhando só a tradução.
- 10
Mudar a pergunta terapêutica
Com o gene principal perdido nas duas cópias, a pergunta vira como fazer render o gene de reserva, que funciona e produz pouco.
Erro comum: Insistir em corrigir o gene inativado.
- 11
Mapear a votação do gene de reserva
Logo adiante do trecho excluído há um silenciador que exercia forte efeito inibitório sobre a inclusão daquele éxon.
Erro comum: Procurar o defeito apenas dentro do trecho excluído.
- 12
Descrever a intervenção
Uma molécula sintética gruda sobre o silenciador: não corta, não corrige, não substitui — o freio deixa de contar na votação.
Erro comum: Descrever a terapia como reposição de proteína ou correção do gene.
- 13
Registrar o resultado clínico
Lactentes passaram a alcançar marcos do desenvolvimento antes inatingíveis e a sobreviver além da primeira infância, com outras opções incluindo reposição gênica por vetor viral e um agente oral que modifica o mesmo splicing.
Erro comum: Tratar a estratégia como experimental sem impacto demonstrado.
- 14
Ler a advertência embutida
O sucesso é atribuído, ao menos em parte, à acessibilidade do silenciador — a lógica não se transporta automaticamente para um alvo inacessível.
Erro comum: Generalizar a estratégia para qualquer gene com problema de splicing.
- 15
Situar a triagem
A triagem pré-concepcional de portadores e a neonatal universal permitem identificação precoce e tratamento pós-natal imediato.
Erro comum: Supor que imediato equivale a antes do dano.
- 16
Confrontar com o início real
Nas formas graves de início precoce, a perda de motoneurônios começa ainda intraútero, e dano irreversível pode ocorrer antes do início do tratamento.
Erro comum: Atribuir o dano residual a atraso do serviço ou dos pais.
- 17
Nomear o limite estrutural
Uma triagem neonatal não pode, por definição, detectar antes do nascimento: o ponto de partida dela é um evento do calendário, não da biologia — por isso terapias fetais são foco de pesquisa.
Erro comum: Tentar resolver com mais agilidade um problema de ponto de partida.
- 18
Distinguir os dois tipos de relógio
Um é de resposta, em que correr mais depressa ajuda; o outro é estrutural, em que é preciso mudar onde o programa começa.
Erro comum: Aplicar a lógica do tempo até a reperfusão a um limite de detecção programada.
- 19
Reconhecer o teto do benefício
O intervalo entre início da doença e início da observação impõe um teto: nenhuma eficácia recupera o que já foi perdido.
Erro comum: Explicar resultado abaixo do esperado apenas por limitação do fármaco.
- 20
Separar ganho de tratamento de ganho de antecipação
Antecipar a detecção melhora os números mesmo com o mesmo tratamento, porque muda a população tratada e o ponto de partida da contagem.
Erro comum: Atribuir ao tratamento um resultado que é, em parte, do momento em que se passou a olhar.
Esperado e alterado
- Transcrição do texto inteiro, com recorte posterior das partes que não entram.
- Decisão de inclusão determinada pelo saldo de sinais de inclusão e exclusão.
- Mesmo gene produzindo proteínas distintas conforme a montagem.
- Gene de reserva transcrevendo e incluindo o trecho crítico em parte dos transcritos.
- Proteína essencial de manutenção celular produzida em quantidade suficiente.
- Letra que não muda o significado do trecho e ainda assim causa doença
- Silenciosa pela regra de tradução, decisiva pela regra de recorte.
- Trecho crítico predominantemente excluído
- Saldo da votação deslocado para exclusão, com proteína truncada e instável.
- Lactente hipotônico com fasciculação de língua
- Perda de motoneurônios por deficiência da proteína essencial.
- Silenciador logo adiante do trecho excluído
- Alvo terapêutico acessível, com forte efeito inibitório sobre a inclusão.
- Marcos do desenvolvimento antes inatingíveis alcançados
- Resultado clínico das terapias modificadoras de doença disponíveis.
- Perda de motoneurônios já presente ao nascimento
- Início intraútero nas formas graves, antes de qualquer triagem neonatal.
- Resultado abaixo do esperado apesar de tratamento imediato
- Teto imposto pelo dano ocorrido antes da detecção, e não falha do fármaco.
- Inclusões macrofágicas no líquido cefalorraquidiano sob terapia intratecal
- Achado descrito em 21 pacientes e 132 amostras, com significado clínico ainda não claro.
Por que isso importa
O gene não é texto contínuo. A célula transcreve tudo e depois recorta e emenda, descartando os intervalos. Esse recorte não é acabamento: é etapa de decisão — e, por isso, o mesmo gene produz proteínas diferentes. O genoma não guarda uma proteína por gene: guarda instruções montáveis de mais de um jeito.
A máquina decide por marcas curtas de início e fim mais sinais auxiliares que dizem "inclua" ou "pule". A decisão é o saldo dessas vozes: é uma votação. Daí a consequência: uma única letra pode reescrever a proteína inteira. Se ela cai num sinal, muda o resultado da votação, e o trecho todo entra ou sai — a alteração é de uma letra, o efeito é de dezenas ou centenas. A gravidade não se estima pelo tamanho da alteração.
E o caso é a demonstração mais limpa disso: a letra não muda o significado do trecho pela regra de tradução e o retira pela regra de recorte. A mesma letra é silenciosa numa camada e catastrófica na outra — a informação genética é lida por mais de um código ao mesmo tempo.
Com o gene principal perdido nas duas cópias, a pergunta muda de "como consertar o que está quebrado" para "como fazer render o que está intacto". Existe um gene de reserva quase idêntico, que funciona e produz pouco porque o trecho crítico é predominantemente excluído.
Mapeada a votação, achou-se logo adiante do trecho um silenciador com forte efeito inibitório sobre a inclusão. Uma molécula sintética gruda exatamente ali: não corta, não corrige, não substitui — ocupa o lugar onde o freio seria lido, e o freio deixa de contar. Silenciar o silenciador.
O resultado é real: marcos do desenvolvimento antes inatingíveis e sobrevida além da primeira infância, hoje ao lado de reposição gênica por vetor viral e de um agente oral que modifica o mesmo splicing. Com uma advertência embutida: o sucesso é atribuído, ao menos em parte, à acessibilidade desse silenciador. A lógica não se transporta automaticamente para um alvo inacessível.
Agora o limite. A triagem neonatal universal permite identificação precoce e tratamento pós-natal imediato — e "imediato" é o máximo que um programa de triagem pode oferecer. Mas nas formas graves de início precoce a perda de motoneurônios começa ainda intraútero, e dano irreversível pode ocorrer antes do início do tratamento.
O relógio da doença partiu antes do relógio do diagnóstico — não por atraso do serviço nem por falha do exame, mas por construção do programa. Uma triagem neonatal não pode, por definição, detectar antes do nascimento: o ponto de partida dela é um evento do calendário, não da biologia. É por isso que terapias fetais são foco de pesquisa em andamento.
A lição: todo programa de detecção define quando nós sabemos, não quando a doença começou. Entre os dois há um intervalo, e nele o dano acumula sem que ninguém esteja errado. E a consequência é dura: esse intervalo impõe um teto ao benefício de qualquer tratamento. Um tratamento pode ser excelente e ainda assim entregar menos do que promete — porque chegou depois de um dano que o programa não tinha como evitar.
Distinga do relógio da isquemia: lá é relógio de resposta, e correr mais depressa ajuda. Aqui é estrutural: o programa começa a contar num ponto fixo, e a doença começou antes. Correr mais dentro do programa não resolve — é preciso mudar onde ele começa.
E o erro de leitura que isso previne: atribuir ao tratamento um resultado que é, em parte, do momento em que se passou a olhar. Antecipar a detecção melhora os números mesmo com o mesmo tratamento, porque muda a população tratada e o ponto de partida da contagem.
Por fim, uma cortesia intelectual: terapias novas revelam achados novos, e nem todo achado novo tem significado conhecido. Descreveram-se inclusões macrofágicas no líquido cefalorraquidiano sob terapia intratecal; em 21 pacientes e 132 amostras — seis a cada quatro semanas, quinze a cada quatro meses — analisaram-se presença, aparecimento e persistência, além de biomarcadores inflamatórios, ferritina sérica e cadeia leve de neurofilamento em 18 pacientes. Os achados permanecem pouco caracterizados e seu significado clínico não está claro — e limitações da terapia continuam a emergir. Achado de significado incerto não é motivo para alarme nem para descarte: é motivo para medir.
Antídoto: quando este programa começa a contar e quando a doença começa? O ganho é do tratamento ou de ter passado a olhar mais cedo? Preciso de mais eficácia ou de outro ponto de partida? Este tratamento chegou tarde, ou o nosso relógio é que começou tarde?
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Alvo terapêutico no controle do splicing de um gene de reserva | Revisão de mecanismo e experiência clínica acumulada (E7, índice de síntese) sobre a primeira doença humana tratada por modulação terapêutica do splicing. | O oligonucleotídeo antisense liga-se a um silenciador intrônico logo adiante do éxon 7 do gene de reserva, forçando a inclusão desse éxon e devolvendo a proteína de manutenção celular que falta; a boa acessibilidade do silenciador explica parte do sucesso, mas efeitos fora do alvo seguem aparecendo. | Nusinersen: the antisense oligonucleotide at the forefront of spinal muscular atrophy treatment. RNA Biol. 2026. doi:10.1080/15476286.2026.2675858 |
| Início da perda neuronal em relação ao momento da triagem | Revisão (E7, índice de síntese) sobre diagnóstico pré-natal, terapias pós-natais atuais, pesquisa em terapias fetais e suas implicações éticas. | Mesmo com triagem pré-concepcional de portadores e triagem neonatal universal, nas formas graves de início precoce a perda de motoneurônios já começou intraútero e o dano pode ser irreversível antes da 1ª dose — daí a pesquisa em terapia fetal. Com as terapias modificadoras, lactentes atingem marcos antes inatingíveis. | Advancements in prenatal diagnosis and potential fetal therapies for spinal muscular atrophy. Clin Ther. 2026. doi:10.1016/j.clinthera.2026.05.021 |
| Achado de significado clínico ainda indefinido sob terapia intratecal | Estudo retrospectivo e transversal (E3, descritivo humano) em pacientes sob terapia intratecal com oligonucleotídeos antisenso. | Em 21 pacientes sob terapia intratecal com oligonucleotídeo antisense e 132 amostras de líquido cefalorraquidiano, descreveram-se inclusões macrofágicas de aparecimento e persistência variáveis; o achado permanece pouco caracterizado e sem significado clínico definido: nem toda alteração no líquor sob tratamento é dano. | Macrophage inclusions in patients undergoing antisense oligonucleotide therapy for ALS or SMA: a retrospective and transversal study. Rev Neurol (Paris). 2026. doi:10.1016/j.neurol.2026.05.005 |
Esquemas e tabelas
Uma letra que muda a votação, e dois relógios que não partem juntos.
| Camada de leitura | O que a letra alterada faz | Consequência |
|---|---|---|
| Regra de tradução | Não muda o significado do trecho | Pareceria inócua |
| Regra de recorte | Muda o saldo da votação | O trecho inteiro é excluído |
| Leitura seguinte | Fica deslocada | Proteína truncada e instável |
Dois tipos de relógio
| Tipo | Exemplo | O que resolve |
|---|---|---|
| De resposta | Tempo até a reperfusão no tecido isquêmico | Correr mais depressa |
| Estrutural | Triagem que começa a contar no nascimento | Mudar onde o programa começa |
O que a molécula sintética faz e não faz
| Não faz | Faz |
|---|---|
| Corrigir o gene inativado | Ocupar o lugar do silenciador |
| Repor a proteína | Retirar o freio da votação |
| Entregar material genético novo | Reprogramar a leitura de um gene que sempre esteve lá |
- O sucesso dependeu da acessibilidade do alvo, não só da ideia.
- Achado de significado incerto não é motivo para alarme nem para descarte: é motivo para medir.
Onde se erra
- Imaginar o gene como sequência ininterrupta
- Há trechos que entram e trechos que não entram na versão final.
- Supor que só as partes úteis são transcritas
- Transcreve-se tudo e recorta-se depois.
- Tratar o splicing como acabamento
- É etapa de decisão: o mesmo gene monta proteínas diferentes.
- Contar proteínas pelo número de genes
- As instruções são montáveis de mais de um jeito.
- Procurar uma regra rígida de corte
- A decisão é o saldo de sinais de inclusão e exclusão.
- Estimar gravidade pelo tamanho da alteração
- Uma letra num sinal muda dezenas ou centenas.
- Classificar uma alteração como inócua pela tradução
- Ela pode ser silenciosa num código e decisiva no outro.
- Insistir em corrigir o gene inativado
- O gene de reserva funciona e apenas produz pouco.
- Procurar o defeito só dentro do trecho excluído
- O freio estava logo adiante dele.
- Descrever a terapia como reposição de proteína
- Ela apenas ocupa o lugar onde o freio seria lido.
- Generalizar a estratégia para qualquer gene
- O sucesso dependeu da acessibilidade do silenciador.
- Supor que imediato equivale a antes do dano
- A perda pode começar ainda intraútero.
- Atribuir o dano residual a atraso do serviço
- O limite é do ponto de partida do programa.
- Aplicar a lógica do tempo até a reperfusão
- Ali o relógio é de resposta; aqui é estrutural.
- Atribuir ao tratamento o ganho da antecipação
- Olhar mais cedo melhora os números com o mesmo tratamento.
Roteiro do raciocínio
Do recorte como votação à triagem que começa a contar depois da doença.
- 01Desfazer a ideia de texto contínuo
- 02Transcrever tudo e recortar depois
- 03Elevar o recorte a etapa de decisão
- 04Explicar o repertório de proteínas
- 05Descrever como a máquina decide
- 06Formular a votação
- 07Derivar o efeito de uma letra
- 08Somar o deslocamento de leitura
- 09Reconhecer os dois códigos
- 10Mudar a pergunta terapêutica
- 11Mapear a votação do gene de reserva
- 12Descrever a intervenção
- 13Registrar o resultado clínico
- 14Ler a advertência sobre acessibilidade
- 15Situar a triagem
- 16Confrontar com o início real da doença
- 17Nomear o limite estrutural e distinguir os relógios
- 18Reconhecer o teto e separar ganho de antecipação
Teste-se
Leve para o paciente
Uma menina no primeiro ano de vida é trazida pela família e a primeira coisa que você ouve é: "Doutor, a Helena toma o remédio desde o primeiro dia de vida e até hoje não senta sozinha. Será que não adiantou nada?" Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
Por que uma letra silenciosa pode ser devastadora? O que a molécula sintética faz exatamente? Quando começa a perda de motoneurônios nas formas graves?
Explique a diferença entre relógio de resposta e relógio estrutural — e por que antecipar a detecção melhora os números mesmo com o mesmo tratamento.