
Função e Bases Moleculares › Herança e transmissão: o que a família diz antes do exame
Meiose e não disjunção
A frequência que se observa depende de onde o observador foi colocado na linha do tempo
O caso
Numa série de 1.585 abortamentos espontâneos, a taxa de detecção de anormalidades cromossômicas foi de 54,44% — predominantemente numéricas. E os subtipos mais comuns foram a trissomia do cromossomo 16 e a monossomia do X.
Agora pergunte a si mesmo quantas crianças com trissomia do 16 você já viu. Nenhuma. Ela está entre os achados mais frequentes nas perdas de primeiro trimestre e é essencialmente ausente do berçário. A tentação é dizer que ela é rara. Ela não é rara: ela é frequente e não chega.
A diferença entre "raro" e "não chega" é o assunto deste capítulo — e ela muda tudo o que se conclui a partir de uma frequência observada. Repare no tamanho do filtro. O abortamento espontâneo ocorre em aproximadamente 15% a 25% das gestações clinicamente reconhecidas, e anormalidades cromossômicas respondem por 50% a 60% das perdas de primeiro trimestre.
Uma fração enorme dos concepto s com desequilíbrio cromossômico é retirada antes de qualquer possibilidade de ser contada como nascimento. E o filtro não é aleatório: ele é seletivo por gravidade. Quanto maior o desequilíbrio, mais cedo a perda. As alterações mais graves saem tão cedo que sequer produzem uma gestação clinicamente reconhecida — e portanto não entram nem na estatística de abortamento.
Existe, portanto, uma escada de pontos de observação — e cada degrau enxerga uma população diferente. O berçário é o degrau mais alto: tudo o que se vê ali já passou por todos os filtros anteriores. As aneuploidias que se conhecem da prática pediátrica não são as mais comuns na concepção: são as que menos atrapalham.
O mecanismo
Comece por um problema que é diferente de tudo o que este bloco discutiu até agora. Copiar o material genético é um problema de fidelidade. Repartir cromossomos é um problema de contagem. São coisas distintas: um erro de cópia troca uma letra; um erro de repartição troca um cromossomo inteiro, com todos os genes que ele carrega.
Por isso as consequências são de ordens de grandeza diferentes — e por isso o mecanismo que evita cada um é completamente distinto. A tarefa da meiose é específica: produzir células com metade do conjunto, mas não uma metade qualquer — exatamente um representante de cada par.
Repare por que isso não é trivial. Não basta dividir por dois: é preciso garantir que nenhum par fique inteiro numa célula e ausente na outra. E a solução é contraintuitiva: para separar corretamente, primeiro é preciso juntar.
Os dois membros de cada par se emparelham fisicamente, formando uma estrutura única. Só depois de emparelhados eles são puxados para lados opostos. O emparelhamento é o que garante que cada lado receba um. Sem ele, a separação seria sorteio — e sorteio erraria com frequência altíssima.
Além disso, enquanto estão emparelhados, os dois membros trocam pedaços entre si. Isso tem duas funções: gera variabilidade e — o que interessa aqui — cria pontos de ligação física que mantêm o par unido até a hora certa de separar.
A troca não é só criativa: ela é estrutural. Um par com poucos pontos de ligação, ou com ligações mal posicionadas, é um par que pode escorregar. Agora o fator que transforma isso num problema clínico: o tempo.
Nos óvulos, a meiose começa antes de a mulher nascer — e para. As células ficam paradas no meio do processo, com os pares já emparelhados, por décadas, e só retomam a divisão quando aquele óvulo é recrutado.
Ou seja: as estruturas que mantêm os pares unidos precisam durar décadas. E estruturas que precisam durar décadas se deterioram. As ligações enfraquecem, as proteínas que abraçam os pares se perdem, e o que era um par firmemente unido vai ficando frouxo.
Daí a relação com a idade materna, e ela não é um dado empírico solto: é uma consequência direta do desenho. O óvulo liberado aos quarenta esperou quarenta anos com o par montado. É coerente com o observado: idade materna avançada, história obstétrica anormal, abortamento precoce e concepção natural associaram-se a maior probabilidade de detecção de aneuploidia; e a incidência de perda por anormalidade cromossômica aumenta com a idade materna.
Quando a separação falha, chama-se não disjunção: o par não se separa, e os dois membros vão para a mesma célula. O resultado é duplo e simétrico: uma célula fica com dois, a outra com nenhum. Depois da fecundação, isso vira três cópias ou uma cópia daquele cromossomo.
Repare que um único erro produz dois tipos de desequilíbrio ao mesmo tempo — e eles não têm a mesma gravidade. Faltar um cromossomo inteiro é pior do que ter um a mais. Com uma cópia só, todos os genes daquele cromossomo ficam com metade da dose, e qualquer defeito na cópia restante fica exposto, sem parceiro para compensar.
Com três cópias, há excesso de dose — desequilíbrio, mas não ausência. É por isso que monossomias autossômicas praticamente não aparecem nem nas perdas analisadas: elas falham antes. A grande exceção observada é a monossomia do X, que figura entre os subtipos mais comuns — coerente com o fato de que o organismo já possui um mecanismo para funcionar com um único cromossomo X ativo.
A exceção confirma a lógica: sobrevive o desequilíbrio para o qual já existe um sistema de ajuste. Agora o ponto central do capítulo, e ele é de método. Cada aneuploidia tem um ponto de parada próprio na linha do tempo do desenvolvimento.
As mais desequilibradas param antes da implantação — e essas gestações nunca chegam a ser clinicamente reconhecidas. Não entram em nenhuma estatística. As intermediárias param no primeiro trimestre — e aparecem nos estudos de material de abortamento.
As menos desequilibradas atravessam e chegam ao nascimento. Existe, portanto, uma escada de filtros — e cada estudo escolhe, sem dizer, em que degrau vai colocar o observador. E aqui está a consequência que quase ninguém enuncia: a frequência medida em cada degrau não é a frequência de ocorrência. É a frequência entre os que chegaram até ali.
Os números tornam isso concreto. Em material de abortamento, a taxa de detecção foi de 54,44% em 1.585 casos, com trissomia do 16 e monossomia do X como subtipos mais comuns; noutra série, a taxa global foi de 67,20%, ou 459 de 683 amostras avaliáveis.
Mais da metade — em alguns conjuntos, dois terços — do material de perda tem alteração cromossômica. No berçário, a proporção é incomparavelmente menor, e o elenco é outro. Não é a mesma doença ficando rara: é uma população diferente sendo observada.
A trissomia do 16 não some entre a concepção e o parto porque deixa de acontecer. Ela some porque quem a tem não atravessa. E daí sai a formulação geral, que é a lição: quando existe atrito entre o evento e o ponto de observação, a distribuição observada é a distribuição dos sobreviventes.
E, se o atrito for seletivo por gravidade — como aqui é —, o que se observa é sistematicamente mais leve do que o que aconteceu. Isso tem um efeito perverso sobre a intuição clínica: a impressão que um pediatra forma sobre "o que uma aneuploidia faz" vem inteiramente das aneuploidias que passam pelo filtro. São as mais benignas do conjunto — e formam uma amostra que não representa o fenômeno.
A gravidade média do que se vê é inversamente proporcional à força do filtro que precede a observação. Antes de generalizar, duas delimitações honestas — e as duas dizem respeito à qualidade do que se mediu.
Primeira: a amostra pode não ser do concepto. Contaminação por células maternas foi encontrada em 2,57% das amostras de material de concepção. Tecido materno misturado ao embrionário produz um resultado que descreve a mãe — e, como já se viu neste bloco, um exame pode estar correto sobre a amostra errada. É por isso que se verifica explicitamente essa contaminação antes de interpretar.
Segunda: a técnica tem cegueiras próprias. A reação com fluorescência quantitativa mostrou-se eficaz para detectar contaminação por células maternas, triploidia e aneuploidias comuns, mas não foi eficaz para detectar mosaicismo. Ou seja, parte do que existe não é contada nem no degrau em que se está olhando — o que empurra a estimativa de frequência para baixo dentro do próprio material analisado.
Somando: há atrito antes da observação e cegueira dentro da observação. As duas coisas empurram na mesma direção — subestimar. A lição generaliza para longe da genética, e o padrão é sempre o mesmo: um ponto de observação tardio numa cadeia com perdas produz uma amostra selecionada.
Registro de internados descreve quem chegou ao hospital, não quem adoeceu. Estatística de pacientes que iniciaram tratamento descreve quem chegou ao tratamento. Série de casos operados descreve quem foi considerado operável. Em todos, a pergunta é a mesma: quem foi retirado entre o evento e a contagem — e o critério de retirada tinha a ver com o que estou medindo?
Se tiver, a distribuição observada está enviesada, e a direção do viés é previsível. O antídoto tem três perguntas. Primeira: em que ponto da linha do tempo esta frequência foi medida? Segunda: houve perda entre o evento e esse ponto — e ela foi seletiva? Se o critério de perda se relaciona com a gravidade, o observado é mais leve que o real.
Terceira: o método usado enxerga tudo o que existe naquele ponto? Cegueiras da técnica somam-se ao atrito e empurram na mesma direção. A pergunta que fica: isto é raro, ou isto apenas não chega até onde eu conto?
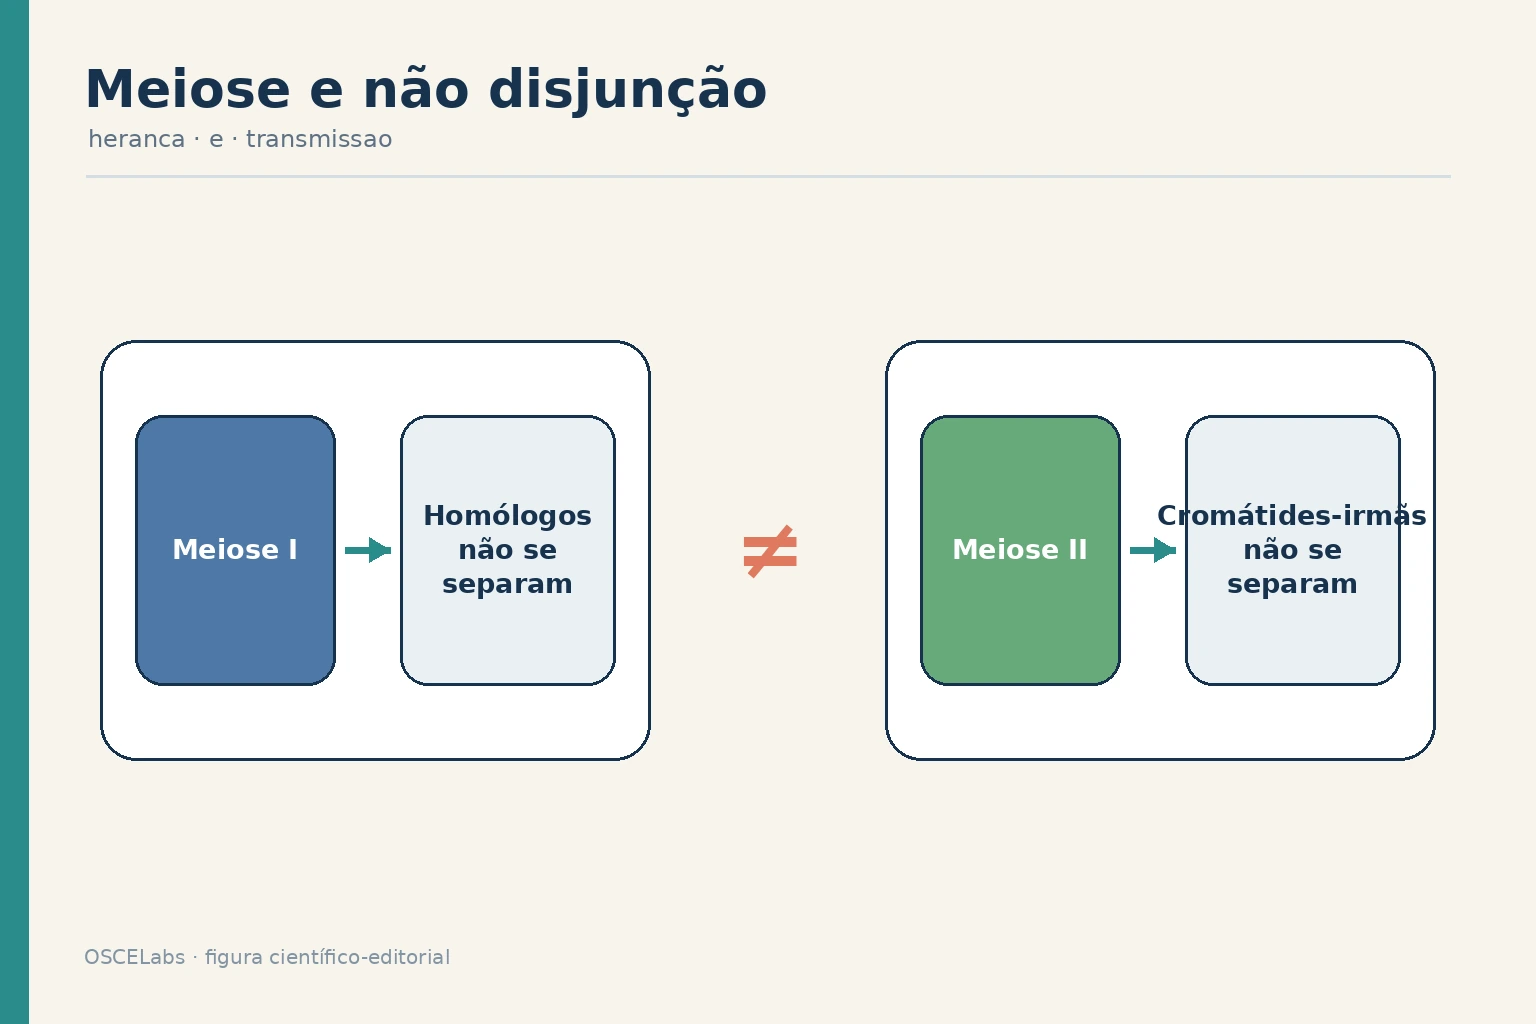
Não disjunção pode ocorrer na meiose I, quando homólogos deixam de se separar, ou na meiose II, quando cromátides-irmãs permanecem juntas. O risco de algumas aneuploidias aumenta com idade materna, mas idade modifica probabilidade e não determina o desfecho individual. Erros pós-zigóticos podem gerar mosaicismo, fazendo com que linhagens celulares tenham cariótipos diferentes. Origem, etapa do erro e seleção entre células ajudam a explicar por que a mesma alteração cromossômica pode produzir apresentações distintas.
O que o mecanismo explica
Seis perguntas que separam frequência de ocorrência de frequência entre sobreviventes.
“Por que a meiose precisa emparelhar antes de separar?”
Sem emparelhamento a separação seria sorteio, e cada célula precisa receber exatamente um de cada par.
“Por que a idade materna importa tanto?”
A meiose do óvulo começa antes do nascimento e para: as estruturas que unem os pares precisam durar décadas.
“Por que faltar um cromossomo é pior que ter um a mais?”
Com uma cópia só, todos os genes ficam com metade da dose e qualquer defeito fica exposto.
“Por que a monossomia do X aparece e as autossômicas não?”
Já existe um mecanismo para funcionar com um único cromossomo X ativo — sobrevive o desequilíbrio com sistema de ajuste.
“Em que ponto da linha do tempo esta frequência foi medida?”
Cada aneuploidia tem um ponto de parada próprio, e cada estudo escolhe um degrau de observação.
“O método enxerga tudo o que existe naquele ponto?”
A técnica com fluorescência quantitativa não foi eficaz para detectar mosaicismo.
Como se orientar
- Separar fidelidade de contagem
- Erro de cópia troca uma letra; erro de repartição troca um cromossomo inteiro.
- Entender por que juntar precede separar
- O emparelhamento garante que cada lado receba um.
- Ver a troca como estrutural
- Ela cria os pontos de ligação que seguram o par até a hora de separar.
- Colocar o tempo no mecanismo
- O óvulo espera décadas com o par já montado.
- Prever o resultado duplo
- Uma célula com dois e outra com nenhum, virando três ou uma cópia.
- Ordenar por gravidade
- Ausência é pior que excesso, e o filtro é seletivo por gravidade.
- Perguntar pelo degrau de observação
- A frequência medida é a frequência entre os que chegaram até ali.
O raciocínio
Do emparelhamento que evita o sorteio à frequência que descreve apenas os sobreviventes.
- 1
Separar os dois tipos de erro
Copiar é problema de fidelidade e repartir é problema de contagem: um erro troca uma letra, o outro troca um cromossomo inteiro.
Erro comum: Tratar aneuploidia como uma mutação de grande porte.
- 2
Enunciar a tarefa da meiose
Produzir células com exatamente um representante de cada par, e não uma metade qualquer.
Erro comum: Reduzir a meiose a dividir o material por dois.
- 3
Explicar por que juntar precede separar
Os dois membros emparelham-se fisicamente, e só depois são puxados para lados opostos: sem isso, a separação seria sorteio.
Erro comum: Imaginar segregação independente sem emparelhamento prévio.
- 4
Dar função estrutural à troca
Enquanto emparelhados, os membros trocam pedaços, o que gera variabilidade e cria pontos de ligação que mantêm o par unido.
Erro comum: Ver a recombinação apenas como fonte de diversidade.
- 5
Prever a fragilidade
Um par com poucos pontos de ligação, ou com ligações mal posicionadas, pode escorregar.
Erro comum: Supor que a separação é sempre confiável quando o emparelhamento ocorreu.
- 6
Inserir o tempo
Nos óvulos a meiose começa antes do nascimento e para, retomando só quando aquele óvulo é recrutado, décadas depois.
Erro comum: Tratar a gametogênese feminina como processo contínuo.
- 7
Derivar a idade materna
As estruturas que mantêm os pares unidos precisam durar décadas e se deterioram — o óvulo liberado aos quarenta esperou quarenta anos com o par montado.
Erro comum: Tratar a associação com idade materna como achado empírico sem mecanismo.
- 8
Confirmar com os dados
Idade materna avançada, história obstétrica anormal, abortamento precoce e concepção natural associaram-se a maior probabilidade de detecção de aneuploidia.
Erro comum: Ignorar as demais variáveis associadas à detecção.
- 9
Nomear a não disjunção
O par não se separa e ambos os membros vão para a mesma célula, produzindo uma com dois e outra com nenhum.
Erro comum: Descrever o erro como perda isolada de um cromossomo.
- 10
Ordenar por gravidade
Com uma cópia só, todos os genes ficam com metade da dose e defeitos ficam expostos; com três, há excesso de dose, mas não ausência.
Erro comum: Supor que trissomia e monossomia têm gravidade equivalente.
- 11
Explicar a exceção do X
A monossomia do X figura entre os subtipos mais comuns, coerente com já existir um mecanismo para funcionar com um único cromossomo X ativo.
Erro comum: Tratar a sobrevivência dessa monossomia como acaso.
- 12
Montar a escada de filtros
As mais desequilibradas param antes da implantação, as intermediárias no primeiro trimestre, e as menos desequilibradas atravessam.
Erro comum: Supor um único ponto de perda para todas as aneuploidias.
- 13
Localizar o observador
Cada estudo escolhe, sem dizer, em que degrau coloca o observador.
Erro comum: Comparar frequências medidas em degraus diferentes.
- 14
Formular a regra
A frequência medida em cada degrau não é a frequência de ocorrência: é a frequência entre os que chegaram até ali.
Erro comum: Ler prevalência ao nascimento como taxa de ocorrência na concepção.
- 15
Aplicar aos números
Taxa de detecção de 54,44% em 1.585 casos e taxa global de 67,20%, ou 459 de 683, em outra série — contra proporção incomparavelmente menor no berçário.
Erro comum: Concluir que a alteração se torna rara ao longo da gestação.
- 16
Nomear o efeito sobre a intuição
A impressão clínica sobre o que uma aneuploidia faz vem das que passam pelo filtro, que são as mais benignas do conjunto.
Erro comum: Generalizar o comportamento das aneuploidias a partir das observadas no berçário.
- 17
Delimitar pela amostra
Contaminação por células maternas foi encontrada em 2,57% das amostras, e tecido materno misturado produz resultado que descreve a mãe.
Erro comum: Interpretar resultado de material de concepção sem verificar contaminação materna.
- 18
Delimitar pela técnica
A reação com fluorescência quantitativa foi eficaz para contaminação materna, triploidia e aneuploidias comuns, mas não para mosaicismo.
Erro comum: Assumir que o método enxerga tudo o que existe naquele degrau.
- 19
Somar as direções
Há atrito antes da observação e cegueira dentro dela, e as duas empurram para subestimar.
Erro comum: Supor que os vieses se cancelam.
- 20
Generalizar o padrão
Registro de internados descreve quem chegou ao hospital; estatística de quem iniciou tratamento descreve quem chegou ao tratamento; série de operados descreve quem foi considerado operável.
Erro comum: Ler qualquer série clínica tardia como descrição do fenômeno completo.
Esperado e alterado
- Emparelhamento dos pares antes da separação, com trocas que criam pontos de ligação.
- Cada gameta recebendo exatamente um representante de cada par.
- Meiose feminina iniciada antes do nascimento e retomada ao recrutamento do óvulo.
- Ausência de contaminação materna significativa em material de concepção.
- Concordância entre técnicas para aneuploidias comuns.
- Par que não se separa na meiose
- Não disjunção: uma célula com dois e outra com nenhum daquele cromossomo.
- Trissomia do 16 em material de abortamento
- Subtipo entre os mais comuns nas perdas e essencialmente ausente ao nascimento.
- Monossomia do X entre os subtipos mais comuns
- Sobrevive porque já existe mecanismo para funcionar com um único X ativo.
- Taxa de detecção de 54,44% em 1.585 abortamentos
- Predominantemente anormalidades numéricas em material de perda de primeiro trimestre.
- Taxa global de 67,20%, ou 459 de 683 amostras
- Proporção observada em outra série de material de concepção.
- Anormalidades cromossômicas em 50% a 60% das perdas de primeiro trimestre
- Magnitude do filtro que precede qualquer observação neonatal.
- Contaminação por células maternas em 2,57% das amostras
- Risco de o resultado descrever a mãe, e não o concepto.
- Mosaicismo não detectado pela técnica com fluorescência quantitativa
- Cegueira do método que se soma ao atrito e empurra para subestimar.
Por que isso importa
Copiar é problema de fidelidade; repartir é problema de contagem. Um erro de cópia troca uma letra; um erro de repartição troca um cromossomo inteiro. A meiose precisa entregar exatamente um representante de cada par — e, para isso, primeiro é preciso juntar: os dois membros emparelham-se fisicamente e só então são puxados para lados opostos. Sem emparelhamento, a separação seria sorteio.
E, enquanto emparelhados, trocam pedaços: isso gera variabilidade e cria pontos de ligação que mantêm o par unido até a hora certa. A troca é também estrutural — um par com poucos pontos de ligação pode escorregar.
O fator clínico é o tempo. Nos óvulos, a meiose começa antes de a mulher nascer e para, retomando décadas depois. As estruturas que mantêm os pares unidos precisam durar décadas — e se deterioram. O óvulo liberado aos quarenta esperou quarenta anos com o par montado.
É coerente com o observado: idade materna avançada, história obstétrica anormal, abortamento precoce e concepção natural associaram-se a maior probabilidade de detecção de aneuploidia. Falhando a separação — não disjunção —, uma célula fica com dois e outra com nenhum, virando três cópias ou uma cópia. E as duas não têm a mesma gravidade: faltar um cromossomo inteiro é pior do que ter um a mais, porque todos os genes ficam com metade da dose e qualquer defeito na cópia restante fica exposto.
Por isso monossomias autossômicas praticamente não aparecem nem nas perdas analisadas. A exceção é a monossomia do X, entre os subtipos mais comuns — coerente com já existir um mecanismo para funcionar com um único X ativo. Sobrevive o desequilíbrio para o qual já existe sistema de ajuste.
Agora o ponto central. Cada aneuploidia tem um ponto de parada próprio: as mais desequilibradas param antes da implantação e nunca chegam a ser gestações clinicamente reconhecidas; as intermediárias param no primeiro trimestre; as menos desequilibradas atravessam.
Existe uma escada de filtros, e cada estudo escolhe, sem dizer, em que degrau coloca o observador. A frequência medida em cada degrau não é a frequência de ocorrência: é a frequência entre os que chegaram até ali.
Os números: abortamento espontâneo em aproximadamente 15% a 25% das gestações clinicamente reconhecidas; anormalidades cromossômicas em 50% a 60% das perdas de primeiro trimestre; taxa de detecção de 54,44% em 1.585 casos, com trissomia do 16 e monossomia do X como mais comuns; e taxa global de 67,20%, ou 459 de 683, em outra série.
Mais da metade — em alguns conjuntos, dois terços — do material de perda tem alteração cromossômica. No berçário, a proporção é incomparavelmente menor e o elenco é outro. A trissomia do 16 não some porque deixa de acontecer: some porque quem a tem não atravessa. Não é a mesma doença ficando rara: é uma população diferente sendo observada.
A lição: quando existe atrito entre o evento e o ponto de observação, a distribuição observada é a distribuição dos sobreviventes. E, se o atrito for seletivo por gravidade, o que se observa é sistematicamente mais leve do que o que aconteceu.
O efeito sobre a intuição é perverso: a impressão clínica sobre "o que uma aneuploidia faz" vem inteiramente das que passam pelo filtro — as mais benignas do conjunto. A gravidade média do que se vê é inversamente proporcional à força do filtro que precede a observação.
Duas delimitações honestas, ambas sobre a qualidade do medido. A amostra pode não ser do concepto: contaminação por células maternas em 2,57% das amostras — e um exame pode estar correto sobre a amostra errada. E a técnica tem cegueiras próprias: foi eficaz para contaminação materna, triploidia e aneuploidias comuns, e não eficaz para mosaicismo.
Há atrito antes da observação e cegueira dentro da observação — e as duas empurram na mesma direção: subestimar. O padrão generaliza: registro de internados descreve quem chegou ao hospital, não quem adoeceu; estatística de quem iniciou tratamento descreve quem chegou ao tratamento; série de casos operados descreve quem foi considerado operável.
A pergunta é sempre a mesma: quem foi retirado entre o evento e a contagem, e o critério de retirada tinha a ver com o que estou medindo? Se tiver, a direção do viés é previsível.
Antídoto: em que ponto da linha do tempo esta frequência foi medida? Houve perda seletiva antes dele? O método enxerga tudo o que existe naquele ponto? Isto é raro, ou isto apenas não chega até onde eu conto?
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Frequência e composição das anormalidades cromossômicas em material de abortamento | Estudo de série tecidual (E3, descritivo humano) com detecção genômica ampla, análise de enriquecimento funcional e sequenciamento completo do exoma em subgrupo com microarranjo negativo e perda gestacional recorrente. | Em 1.585 abortamentos espontâneos avaliados por microarranjo cromossômico, 54,4% tinham anormalidade cromossômica, quase sempre numérica — trissomia do 16 e monossomia do X as mais comuns: a não disjunção meiótica é a causa mais frequente de perda gestacional precoce. | The genetic etiology of spontaneous abortion: insights from chromosomal microarray analysis and whole-exome sequencing. Sci Rep. 2026;16:53777. doi:10.1038/s41598-026-53777-w |
| Magnitude do filtro no primeiro trimestre | Análise retrospectiva de 1.168 casos (E3, descritivo humano) de material de abortamento de primeiro trimestre, com avaliação por dois patologistas cegos entre si e reavaliação dos casos discordantes. | A perda gestacional precoce, definida como perda espontânea antes de 20 semanas ou com feto pesando menos de 500 gramas, afeta até 15% das gestações clinicamente reconhecidas, e anormalidades cromossômicas, particularmente aneuploidias como trissomias e monossomia do X, respondem por 50% a 60% das perdas de primeiro trimestre, com incidência que aumenta com a idade materna | Retrospective analysis of 1168 cases of ovular decidual tissue from first-trimester abortions: proposal for a histopathological diagnostic framework. Diagnostics (Basel). 2026;16(8):1128. doi:10.3390/diagnostics16081128 |
| Taxa global de anormalidades e limitações da técnica em material de concepção | Estudo comparativo de estratégias diagnósticas (E3, descritivo humano) com avaliação de eficiência de detecção e custo de três combinações de técnicas. | Em 701 amostras de material de concepção, 67,2% (459 de 683 avaliáveis) tinham anormalidade cromossômica; a técnica molecular detectou bem triploidia, aneuploidias comuns e contaminação materna (2,57%), mas não mosaicismo: o que se enxerga depende do método escolhido. | The value of quantitative fluorescence polymerase chain reaction for the products of conception in the era of copy number variation sequencing. Front Genet. 2025;16:1750362. doi:10.3389/fgene.2025.1750362 |
Esquemas e tabelas
Um erro produz dois desequilíbrios, e cada degrau de observação enxerga uma população diferente.
| Uma cópia (monossomia) | Três cópias (trissomia) | |
|---|---|---|
| Dose dos genes | Metade | Excesso |
| Defeito na cópia restante | Fica exposto, sem parceiro | Compensável |
| Gravidade relativa | Maior | Menor |
| Presença nas perdas analisadas | Praticamente ausente nos autossomos | Frequente |
| Exceção observada | Monossomia do X, entre as mais comuns | — |
A escada de observação
| Degrau | Quem é observado | O que fica de fora |
|---|---|---|
| Concepção | Todos | — |
| Antes da implantação | Ninguém é contado | As alterações mais desequilibradas |
| Primeiro trimestre | Material de abortamento | O que se perdeu antes |
| Nascimento | Recém-nascidos | Tudo o que não atravessou |
Dois vieses que empurram na mesma direção
| Fonte | Efeito sobre a frequência estimada |
|---|---|
| Atrito antes da observação | Subestima o que ocorreu |
| Contaminação por células maternas em 2,57% | Pode descrever a mãe em vez do concepto |
| Método não eficaz para mosaicismo | Deixa de contar parte do que existe |
- A gravidade média do que se vê é inversamente proporcional à força do filtro que precede a observação.
- Registro de internados descreve quem chegou ao hospital, não quem adoeceu.
Onde se erra
- Tratar aneuploidia como mutação de grande porte
- É erro de contagem, não de fidelidade de cópia.
- Reduzir a meiose a dividir por dois
- É preciso um representante de cada par, não uma metade qualquer.
- Imaginar segregação sem emparelhamento prévio
- Sem juntar, separar seria sorteio.
- Ver a recombinação só como fonte de diversidade
- Ela cria os pontos de ligação que seguram o par.
- Tratar a gametogênese feminina como contínua
- Ela começa antes do nascimento e fica parada por décadas.
- Tratar a idade materna como achado sem mecanismo
- As estruturas de ligação precisam durar décadas e se deterioram.
- Descrever o erro como perda isolada
- A não disjunção produz simultaneamente excesso e ausência.
- Supor gravidade equivalente
- Ausência é pior que excesso, e por isso monossomias autossômicas falham antes.
- Tratar a sobrevivência da monossomia do X como acaso
- Já existe mecanismo para funcionar com um único X ativo.
- Supor um único ponto de perda
- Cada aneuploidia tem seu próprio ponto de parada.
- Comparar frequências de degraus diferentes
- Cada degrau observa uma população distinta.
- Ler prevalência ao nascimento como taxa de ocorrência
- É a frequência entre os que chegaram.
- Generalizar a partir do que se vê no berçário
- São as aneuploidias que menos atrapalham.
- Interpretar material de concepção sem verificar contaminação
- Ela apareceu em 2,57% das amostras.
- Assumir que o método enxerga tudo
- A técnica não foi eficaz para mosaicismo.
Roteiro do raciocínio
Do emparelhamento que evita o sorteio à frequência que descreve apenas os sobreviventes.
- 01Separar fidelidade de contagem
- 02Enunciar a tarefa da meiose
- 03Explicar por que juntar precede separar
- 04Dar função estrutural à troca
- 05Prever a fragilidade do par
- 06Inserir o tempo na meiose feminina
- 07Derivar a associação com idade materna
- 08Confirmar com os dados de detecção
- 09Nomear a não disjunção
- 10Ordenar monossomia e trissomia por gravidade
- 11Explicar a exceção da monossomia do X
- 12Montar a escada de filtros
- 13Localizar o observador em cada degrau
- 14Formular a regra da frequência observada
- 15Aplicar aos números das séries
- 16Nomear o efeito sobre a intuição clínica
- 17Delimitar pela amostra e pela técnica
- 18Somar as direções e generalizar o padrão
Teste-se
Leve para o paciente
Mulher de 29 anos chega ao ambulatório e a primeira coisa que você ouve é: "Doutor(a), eu vim no retorno depois que perdi o bebê, e trouxe o resultado do exame do material; queria entender por que isso aconteceu comigo." Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
Por que a meiose precisa emparelhar antes de separar? Por que a idade materna importa? Por que faltar um cromossomo é pior que ter um a mais?
Explique por que a trissomia do 16 é frequente nas perdas e ausente no berçário — e por que a frequência medida depende do degrau em que o observador foi colocado.