
Função e Bases Moleculares › A matéria da vida: água, pH e as proteínas que trabalham
Enovelamento e solubilidade
A hemoglobina fetal não entra no polímero, e é por isso que ela protege
O caso
Menina de 4 anos chega ao pronto-socorro com dor intensa nas mãos e nos pés, que estão inchados. É a terceira vez no ano. O irmão mais velho tem a mesma troca de aminoácido — herdada do mesmo pai — e nunca teve nada. Ele tem traço falciforme; ela tem doença falciforme.
A diferença entre os dois não está na molécula alterada. Está na companhia. Ele carrega, ao lado da hemoglobina alterada, uma quantidade grande de hemoglobina normal. Ela não. E aqui está o ponto que organiza o capítulo: a hemoglobina normal e a fetal não entram no polímero. Elas ocupam espaço, diluem, e atrasam a montagem — sem participar dela.
Isso não é detalhe acadêmico. É o mecanismo pelo qual, dentro do mesmo diagnóstico, os pacientes se comportam de formas radicalmente diferentes. Num estudo prospectivo com 3.578 pacientes e 18.356 pessoas-ano, 39% dos pacientes com anemia falciforme não tiveram nenhum episódio de dor — enquanto 5,2% deles concentraram 32,9% de todos os episódios.
E o que separava um extremo do outro incluía exatamente as duas variáveis que a bioquímica prevê: hematócrito alto — isto é, mais hemoglobina alterada por célula — e hemoglobina fetal baixa — isto é, menos diluente. Há ainda uma lição de método escondida aí, e ela vale para toda a biologia molecular.
O mecanismo da falcização foi descoberto em tubo de ensaio, com hemoglobina purificada. E um sistema purificado tem uma característica que o torna ao mesmo tempo poderoso e enganoso: ele não tem os parceiros que, dentro da célula, modulam o fenômeno. Purificar é remover o ruído — e, às vezes, remover justamente o que segura a doença.
O mecanismo
Comece pelo enovelamento, porque é dele que sai tudo. Uma proteína é uma cadeia de aminoácidos que se dobra numa forma definida. E essa forma não é decorativa: é ela que cria o sítio ativo, a superfície de ligação e — o que interessa aqui — a face que a proteína mostra para a água.
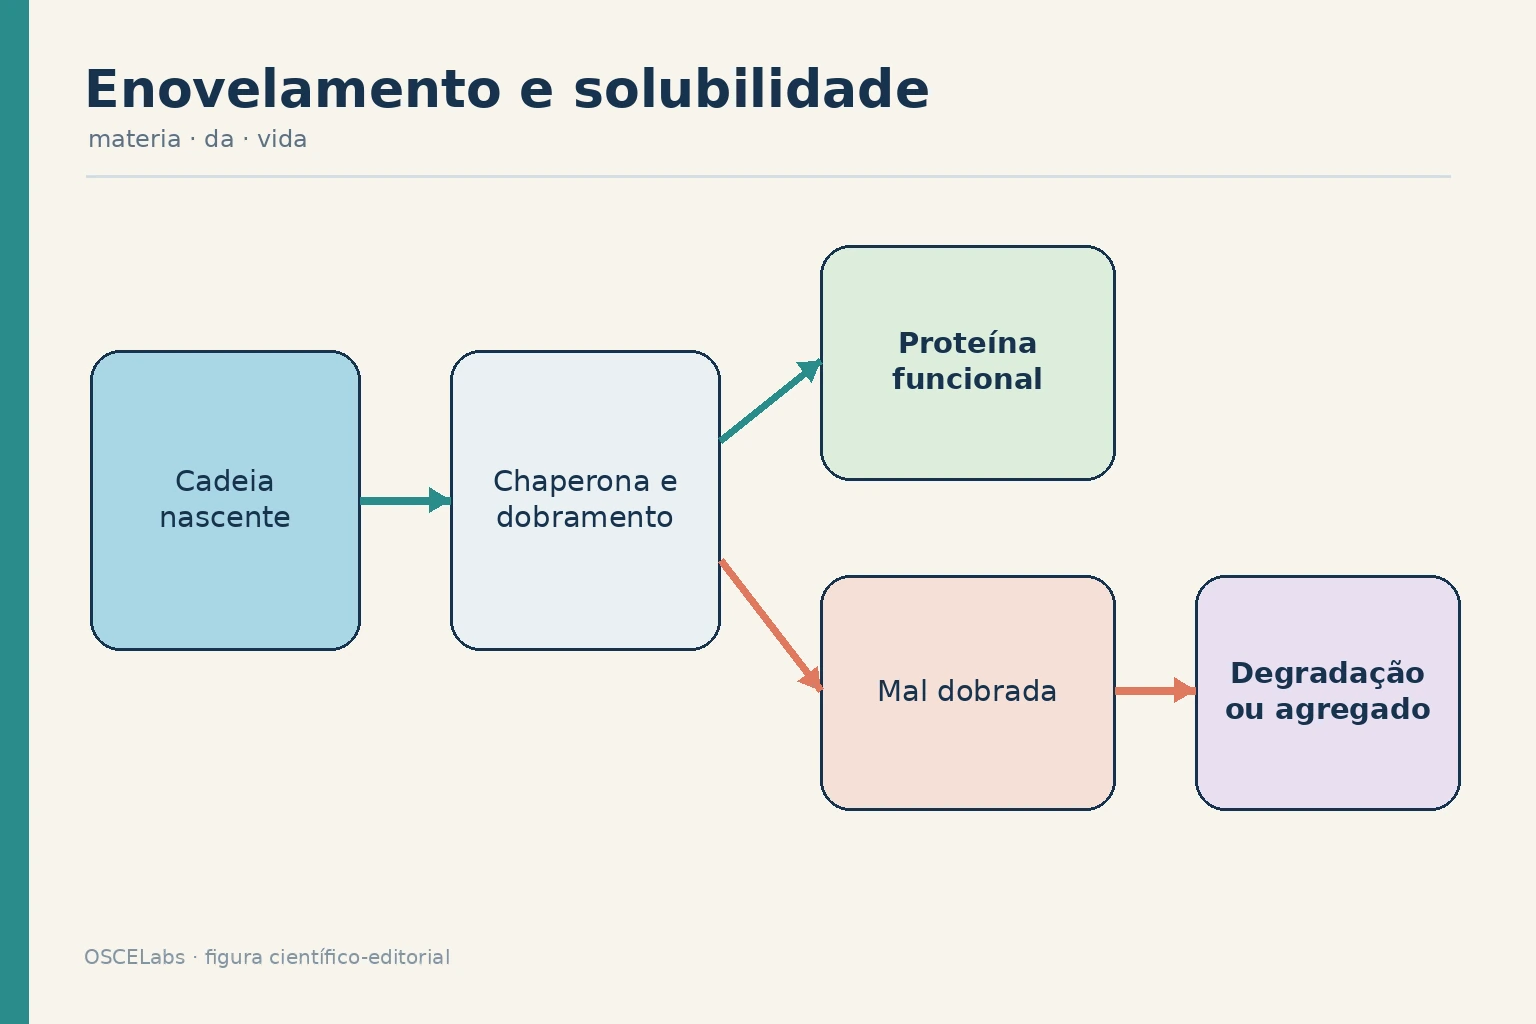
Aminoácidos hidrofílicos tendem a ficar por fora, em contato com a água; hidrofóbicos, escondidos por dentro. É esse arranjo que mantém a proteína dissolvida. Uma proteína solúvel, portanto, é uma proteína que guardou seus trechos oleosos para dentro.
Agora troque um único aminoácido — um hidrofílico por um hidrofóbico — numa posição que fica na superfície. A proteína continua funcionando: ela ainda liga e libera oxigênio. O enovelamento geral não se desfaz. Mas apareceu uma mancha oleosa exposta na parte de fora.
E uma mancha oleosa exposta procura companhia. Ela encaixa numa cavidade complementar de outra molécula igual — que também tem a mancha e também tem a cavidade. Uma se liga à outra, e a segunda à terceira. O resultado é uma fibra rígida crescendo dentro da célula.
Repare no que mudou: não foi a função, foi a solubilidade. A hemoglabina alterada transporta oxigênio normalmente — o defeito aparece quando ela sai de solução. E aqui entra a condição que dispara o processo: só a forma desoxigenada expõe a mancha. Enquanto a molécula está com oxigênio, a superfície crítica fica indisponível.
Isso amarra a doença à circulação. A célula fica desoxigenada onde o fluxo é lento — na microcirculação, no frio, na desidratação, na acidose. É exatamente ali que a fibra se forma, que a célula endurece, que ela deixa de passar pelo capilar e que o fluxo piora ainda mais.
A obstrução é consequência da rigidez, e a rigidez é consequência de uma proteína que saiu de solução. Falta a variável que decide se isso vai ou não acontecer a tempo: o tempo. A montagem da fibra não é instantânea. Existe um período em que as moléculas ainda estão soltas e nada aconteceu — e, se a célula voltar à circulação oxigenada antes disso, a fibra não chega a se formar.
É uma corrida entre o tempo que a célula leva para atravessar a microcirculação e o tempo que o polímero leva para se montar. A doença acontece quando a segunda ganha. E o que decide a velocidade da montagem é, sobretudo, a concentração da proteína alterada. Quanto mais moléculas por volume, mais colisões produtivas, mais rápido o início.
Essa dependência é muito acentuada — pequenas variações de concentração produzem variações grandes no tempo de espera. Por isso qualquer coisa que concentre a hemoglobina dentro da hemácia empurra o sistema na direção errada: desidratação celular, perda de água, hematócrito alto.
E é por isso, também, que diluir funciona. Aqui chega a peça central. Dentro da hemácia não existe só a hemoglobina alterada. Podem existir hemoglobina normal e hemoglobina fetal — e as duas têm uma propriedade decisiva.
Elas não entram no polímero. Falta-lhes a superfície complementar necessária para se encaixar na fibra. Então elas fazem duas coisas ao mesmo tempo: ocupam volume — reduzindo a concentração efetiva da alterada — e interrompem a fibra, porque uma molécula que não encaixa não propaga a montagem.
Um diluente que também é um terminador de cadeia. É a combinação mais eficiente possível. Isso explica o irmão do começo. No traço, a hemoglobina normal responde pela maior parte do conteúdo da célula: a concentração da alterada nunca chega ao ponto em que a montagem vence a corrida, em condições habituais.
A mesma mutação, em quantidade diferente, deixa de ser doença. Agora a parte de método, que é a lição. Tudo isso — a polimerização, a dependência da concentração, o papel da desoxigenação — foi estabelecido com hemoglobina purificada em tubo de ensaio. E é um triunfo: foi assim que se entendeu por que uma troca de aminoácido produz uma doença vascular.
Mas um sistema purificado tem uma característica que precisa ser dita em voz alta: ele contém o que o pesquisador colocou, e nada mais. No tubo com hemoglobina alterada pura, não há hemoglobina fetal, não há hemoglobina normal, não há a membrana da hemácia, não há o volume celular variando, não há o tempo de trânsito da microcirculação.
Purificar remove o ruído — e remove, junto, os parceiros que modulam o fenômeno. O sistema reconstituído mostra o mecanismo em estado puro e, por isso mesmo, prevê o pior caso, não o caso real. Se alguém tivesse tentado prever a gravidade clínica a partir da bancada, teria previsto uma doença uniforme: todo mundo com o mesmo genótipo, o mesmo comportamento.
Não é o que se observa. E os números são impressionantes. No estudo prospectivo com 3.578 pacientes e 12.290 episódios de dor em 18.356 pessoas-ano, a taxa média foi de 0,8 episódio por paciente-ano na anemia falciforme, 1,0 na S beta zero talassemia e 0,4 na doença SC e na S beta mais talassemia.
Mas a média esconde o essencial. Dentro do mesmo genótipo, a variação foi enorme: 39% dos pacientes com anemia falciforme não tiveram nenhum episódio, enquanto 1% teve mais de seis por ano — e os 5,2% com 3 a 10 episódios por ano concentraram 32,9% de todos os episódios.
Ou seja: uma pequena minoria carrega um terço da doença, e uma proporção enorme não tem crise nenhuma. Um diagnóstico, comportamentos opostos. E o que se associou às taxas altas? Exatamente o que a bioquímica previa: hematócrito alto e hemoglobina fetal baixa. Concentração para cima, diluente para baixo.
Vale registrar um detalhe fino e revelador: a alfa-talassemia não teve efeito sobre a dor além da sua associação com hematócrito aumentado. Ela mexe na dor pela via da concentração, e não por outro caminho — o que reforça o mecanismo em vez de acrescentar um novo.
E há a consequência dura: entre maiores de 20 anos, quem tinha taxas altas de dor morreu mais cedo. A frequência de crises não é só desconforto; é marcador de gravidade. Se a teoria está certa, existe uma intervenção óbvia: aumentar o diluente.
Isso foi testado. Num ensaio randomizado duplo-cego com 299 adultos em 21 centros, todos com história de três ou mais crises por ano, um fármaco capaz de elevar a hemoglobina fetal foi comparado a placebo.
Os 152 pacientes que receberam o fármaco tiveram taxa anual mediana de 2,5 crises contra 4,5 nos 147 do placebo (p < 0,001). O tempo até a primeira crise passou de 1,5 para 3,0 meses (p = 0,01) e até a segunda, de 4,6 para 8,8 meses (p < 0,001).
E os desfechos que importam além da dor também se moveram: síndrome torácica em 25 contra 51 pacientes (p < 0,001) e transfusão em 48 contra 73 (p = 0,001). O estudo foi interrompido após seguimento médio de 21 meses.
A previsão bioquímica se confirmou no desfecho clínico: mexer no diluente muda a doença. Feche a lição, porque ela é sobre o que um sistema purificado pode e não pode dizer. O sistema reconstituído é insubstituível para estabelecer mecanismo. Foi ele que mostrou que a fibra existe, que ela depende da desoxigenação e que a concentração governa a velocidade.
Ele é péssimo para prever magnitude clínica, porque a magnitude, no organismo, é decidida pelos parceiros que a purificação removeu — aqui, duas hemoglobinas que não fazem nada de especial exceto não participar. É um caso raro em que o modulador atua por ausência de função: a hemoglobina fetal protege não fazendo nada — não polimerizando. Um sistema montado só com o componente ativo jamais mostraria isso, porque o componente inerte teria sido descartado como irrelevante. A pergunta que fica: este resultado veio de um sistema com todos os parceiros presentes — e, se não veio, o que foi descartado por parecer inerte?
O que o mecanismo explica
Seis perguntas que ligam uma troca de aminoácido à frequência de crises.
“A proteína perdeu função ou perdeu solubilidade?”
A hemoglobina alterada continua ligando e liberando oxigênio; o defeito aparece quando ela sai de solução.
“A célula está oxigenada ou desoxigenada?”
Só a forma desoxigenada expõe a superfície que permite a montagem da fibra.
“Qual é a concentração de hemoglobina dentro da célula?”
A velocidade da montagem depende fortemente da concentração — desidratação e hematócrito alto empurram na direção errada.
“Quanta hemoglobina fetal este paciente tem?”
Ela não entra no polímero: dilui e interrompe a fibra. Hemoglobina fetal baixa associou-se a taxas altas de dor.
“Por que o irmão com traço nunca teve crise?”
A hemoglobina normal responde pela maior parte do conteúdo celular, e a concentração da alterada não chega ao ponto de vencer a corrida.
“Este resultado veio de sistema purificado?”
Um sistema reconstituído não tem os parceiros que modulam o fenômeno — ele prevê o pior caso, não o caso real.
Como se orientar
- Separar função de solubilidade
- Nem toda mutação prejudica a atividade: aqui a proteína funciona e sai de solução.
- Ligar a superfície exposta ao estado de oxigenação
- A mancha oleosa só aparece na forma desoxigenada.
- Pensar em corrida, não em interruptor
- Trânsito pela microcirculação contra tempo de montagem do polímero.
- Tratar concentração como a alavanca principal
- Desidratação celular e hematócrito alto aceleram a montagem.
- Reconhecer o diluente que também termina a cadeia
- Hemoglobina fetal e normal ocupam volume e não encaixam na fibra.
- Esperar heterogeneidade dentro do mesmo genótipo
- 39% sem nenhum episódio e 5,2% concentrando um terço de todos eles.
- Perguntar o que a purificação removeu
- O parceiro descartado por parecer inerte pode ser exatamente o modulador.
O raciocínio
Do enovelamento à fibra, da fibra à heterogeneidade clínica, e daí ao limite do sistema purificado.
- 1
Situar o enovelamento como criador de superfície
A cadeia se dobra numa forma definida, e é essa forma que decide qual face a proteína mostra para a água.
Erro comum: Pensar o enovelamento apenas como requisito do sítio ativo.
- 2
Explicar a solubilidade pela distribuição dos aminoácidos
Hidrofílicos para fora, hidrofóbicos escondidos por dentro: uma proteína solúvel guardou seus trechos oleosos.
Erro comum: Tratar solubilidade como propriedade genérica da molécula.
- 3
Introduzir a troca de um único aminoácido na superfície
Um hidrofílico substituído por um hidrofóbico numa posição externa: o enovelamento geral se mantém e aparece uma mancha oleosa exposta.
Erro comum: Supor que toda mutação relevante desfaz a estrutura da proteína.
- 4
Separar função de solubilidade
A hemoglobina alterada continua ligando e liberando oxigênio. O que mudou foi a tendência a sair de solução.
Erro comum: Procurar perda de função onde o defeito é de solubilidade.
- 5
Montar a fibra por encaixe complementar
A mancha exposta encaixa numa cavidade de outra molécula igual, e a montagem se propaga em cadeia.
Erro comum: Imaginar agregação amorfa. A fibra tem geometria e é rígida.
- 6
Amarrar a montagem ao estado de oxigenação
Só a forma desoxigenada expõe a superfície crítica: com oxigênio ligado, a face fica indisponível.
Erro comum: Tratar a polimerização como constante, independente do ambiente.
- 7
Localizar o evento na circulação
A célula desoxigena onde o fluxo é lento — microcirculação, frio, desidratação, acidose —, e é ali que a fibra se forma, a célula endurece e o fluxo piora.
Erro comum: Separar o evento molecular do evento vascular. Um alimenta o outro.
- 8
Pensar o processo como corrida contra o tempo
Existe um período em que as moléculas ainda estão soltas; se a célula voltar à circulação oxigenada antes disso, a fibra não se forma.
Erro comum: Tratar a falcização como evento imediato e inevitável.
- 9
Identificar a concentração como alavanca
A velocidade da montagem depende fortemente da concentração da proteína alterada: mais moléculas por volume, montagem mais rápida.
Erro comum: Considerar a concentração intracelular um dado fixo.
- 10
Reconhecer o papel das outras hemoglobinas
Hemoglobina normal e fetal não entram no polímero: ocupam volume, reduzem a concentração efetiva da alterada e interrompem a fibra por não encaixarem.
Erro comum: Tratar as outras hemoglobinas como espectadoras inertes. Elas modulam por não participar.
- 11
Explicar o traço pelo mesmo raciocínio
No traço, a hemoglobina normal responde pela maior parte do conteúdo celular, e a concentração da alterada não chega ao ponto de vencer a corrida em condições habituais.
Erro comum: Explicar a diferença entre traço e doença por gravidade da mutação. A mutação é a mesma.
- 12
Nomear a origem do conhecimento
A polimerização, sua dependência da desoxigenação e o efeito da concentração foram estabelecidos com hemoglobina purificada em tubo de ensaio.
Erro comum: Tratar o achado de bancada como se tivesse sido observado no paciente.
- 13
Explicitar o que um sistema purificado contém
Ele contém o que o pesquisador colocou e nada mais: sem hemoglobina fetal, sem hemoglobina normal, sem membrana, sem variação de volume celular, sem tempo de trânsito.
Erro comum: Ler resultado in vitro como se as condições fossem as da célula.
- 14
Deduzir o viés do sistema reconstituído
Purificar remove o ruído e remove junto os parceiros que modulam o fenômeno: o sistema mostra o mecanismo em estado puro e prevê o pior caso.
Erro comum: Extrapolar magnitude clínica a partir de bancada.
- 15
Confrontar a previsão com a observação
Se a bancada bastasse, a doença seria uniforme dentro do genótipo. Em 3.578 pacientes, 39% com anemia falciforme não tiveram nenhum episódio e 5,2% concentraram 32,9% de todos eles.
Erro comum: Esperar homogeneidade clínica a partir de homogeneidade genotípica.
- 16
Ler os fatores associados
Taxas altas associaram-se a hematócrito alto e hemoglobina fetal baixa; a alfa-talassemia não teve efeito além da associação com hematócrito aumentado.
Erro comum: Buscar fatores novos quando os observados confirmam o mecanismo já conhecido.
- 17
Guardar o desfecho duro
Entre maiores de 20 anos, quem tinha taxas altas de dor morreu mais cedo: a frequência de crises é marcador de gravidade.
Erro comum: Tratar a crise dolorosa apenas como problema de conforto.
- 18
Derivar a intervenção do mecanismo
Se o diluente protege, aumentar o diluente deve reduzir a doença — e essa previsão é testável.
Erro comum: Parar no mecanismo. A previsão precisa ir a ensaio.
- 19
Ler o ensaio
Em 299 adultos com três ou mais crises por ano, o grupo tratado teve mediana de 2,5 crises por ano contra 4,5 no placebo (p < 0,001), com tempo até a primeira crise de 3,0 contra 1,5 mês e até a segunda de 8,8 contra 4,6 meses.
Erro comum: Avaliar apenas a taxa de crises. Os desfechos adicionais também se moveram.
- 20
Fechar a lição sobre o sistema purificado
O sistema reconstituído é insubstituível para estabelecer mecanismo e péssimo para prever magnitude clínica, porque a magnitude é decidida pelos parceiros que a purificação removeu — e aqui o modulador atua por ausência de função.
Erro comum: Descartar como irrelevante o componente que não faz nada. Ele pode ser exatamente o que segura a doença.
Esperado e alterado
- Aminoácidos hidrofóbicos escondidos no interior da proteína, mantendo-a dissolvida.
- Hemoglobina ligando e liberando oxigênio sem sair de solução.
- Tempo de trânsito pela microcirculação menor que o tempo de montagem de qualquer agregado.
- Hemoglobina fetal e normal ocupando volume sem participar de polímeros.
- Concentração intracelular de hemoglobina mantida por regulação do volume celular.
- Dor e edema de mãos e pés em criança pequena
- Obstrução microvascular por células enrijecidas: a fibra se formou onde o fluxo é lento.
- Mesma mutação sem manifestação clínica
- Traço: a hemoglobina normal dilui a alterada e a concentração não atinge o ponto de vencer a corrida.
- Hematócrito alto em paciente com anemia falciforme
- Mais hemoglobina alterada por célula: fator associado a taxas altas de dor.
- Hemoglobina fetal baixa
- Menos diluente e menos terminador de fibra — também associado a taxas altas de dor.
- Paciente com três ou mais crises por ano
- Perfil do grupo em que a elevação da hemoglobina fetal reduziu crises de 4,5 para 2,5 por ano.
- Crises frequentes em adulto acima de 20 anos
- Associado a morte mais precoce: a frequência de crises é marcador de gravidade.
- Desidratação, frio ou acidose precedendo a crise
- Condições que concentram a hemoglobina ou prolongam a desoxigenação, favorecendo a montagem.
- Previsão de gravidade feita a partir de dados de bancada
- Superestimativa esperada: o sistema purificado não contém os parceiros que modulam o fenômeno.
Por que isso importa
Uma proteína solúvel é uma proteína que guardou os trechos oleosos para dentro. Trocar um aminoácido hidrofílico por um hidrofóbico na superfície não desfaz o enovelamento: cria uma mancha oleosa exposta. A função permanece — a hemoglobina alterada liga e libera oxigênio. O que mudou foi a solubilidade.
A mancha encaixa numa cavidade complementar de outra molécula igual, e a montagem se propaga: forma-se uma fibra rígida dentro da célula. E só a forma desoxigenada expõe a mancha. Por isso o evento acontece onde o fluxo é lento: microcirculação, frio, desidratação, acidose. A célula endurece, não passa pelo capilar, e o fluxo piora ainda mais.
Mas a montagem leva tempo. É uma corrida entre o trânsito pela microcirculação e o tempo de montagem — e o que decide a velocidade é, sobretudo, a concentração. Daí a peça central: hemoglobina normal e fetal não entram no polímero. Elas ocupam volume — reduzindo a concentração efetiva — e interrompem a fibra, porque não encaixam. Um diluente que também é terminador de cadeia.
É isso que explica o traço: mesma mutação, quantidade diferente, e a concentração nunca chega ao ponto de vencer a corrida. Tudo isso foi estabelecido com hemoglobina purificada. E um sistema purificado contém o que o pesquisador colocou e nada mais: sem hemoglobina fetal, sem hemoglobina normal, sem membrana, sem tempo de trânsito.
Purificar remove o ruído e remove junto os parceiros que modulam o fenômeno. O sistema mostra o mecanismo em estado puro e prevê o pior caso. A observação clínica confirma que o pior caso não é a regra. Em 3.578 pacientes e 18.356 pessoas-ano, a taxa média foi de 0,8 episódio por paciente-ano na anemia falciforme — mas 39% não tiveram nenhum, 1% teve mais de seis por ano, e os 5,2% com 3 a 10 episódios anuais concentraram 32,9% de todos.
E os fatores associados a taxas altas foram exatamente os previstos: hematócrito alto e hemoglobina fetal baixa. A alfa-talassemia não teve efeito além da associação com hematócrito — ela age pela via da concentração, o que reforça o mecanismo.
Não é só desconforto: entre maiores de 20 anos, quem tinha taxas altas morreu mais cedo. A previsão foi testada. Em 299 adultos com três ou mais crises por ano, elevar a hemoglobina fetal reduziu a mediana de 4,5 para 2,5 crises por ano (p < 0,001), aumentou o tempo até a primeira crise (3,0 contra 1,5 mês) e até a segunda (8,8 contra 4,6 meses), e reduziu síndrome torácica (25 contra 51) e transfusões (48 contra 73).
A lição: o sistema reconstituído é insubstituível para estabelecer mecanismo e péssimo para prever magnitude clínica — porque a magnitude é decidida pelos parceiros que a purificação removeu. E aqui o caso é extremo: o modulador atua por ausência de função. A hemoglobina fetal protege não fazendo nada — não polimerizando. Um sistema montado só com o componente ativo jamais mostraria isso, porque o componente inerte teria sido descartado como irrelevante. Este resultado veio de um sistema com todos os parceiros presentes — e, se não veio, o que foi descartado por parecer inerte?
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Taxa de episódios dolorosos e fatores associados na doença falciforme | Estudo prospectivo de história natural (E1/E3) com 3.578 pacientes, de recém-nascidos a 66 anos, acompanhados em centros clínicos dos Estados Unidos, com 12.290 episódios de dor registrados em 18.356 pessoas-ano. A alfa-talassemia não teve efeito sobre a dor além de sua associação com hematócrito aumentado. | A taxa média foi de 0,8 crise dolorosa por paciente-ano na anemia falciforme e 0,4 na doença SC, mas a distribuição é muito desigual: 39% dos pacientes não tiveram nenhuma crise e 5,2% concentraram 32,9% de todas elas. Taxas altas associaram-se a hematócrito alto, hemoglobina fetal baixa e morte mais precoce. | Platt OS, Thorington BD, Brambilla DJ, et al. Pain in sickle cell disease. Rates and risk factors. N Engl J Med. 1991;325(1):11-16. doi:10.1056/NEJM199107043250103 |
| Efeito da elevação da hemoglobina fetal sobre crises dolorosas | Ensaio clínico randomizado duplo-cego (E1, humano com desfecho) com 299 adultos (148 homens e 151 mulheres) em 21 centros, todos com história de três ou mais crises dolorosas por ano, comparando hidroxiureia a placebo. O estudo foi interrompido após seguimento médio de 21 meses. As doses ao final variaram de 0 a 35 mg por quilograma por dia, e os autores registram que os efeitos benéficos não se manifestam nas primeiras semanas. | Mediana de 2,5 crises por ano no grupo tratado contra 4,5 no placebo (p < 0,001); tempo mediano até a primeira crise de 3,0 contra 1,5 mês (p = 0,01) e até a segunda de 8,8 contra 4,6 meses (p < 0,001); síndrome torácica em 25 contra 51 pacientes (p < 0,001) e transfusão em 48 contra 73 (p = 0,001) | Charache S, Terrin ML, Moore RD, et al. Effect of hydroxyurea on the frequency of painful crises in sickle cell anemia. N Engl J Med. 1995;332(20):1317-1322. doi:10.1056/NEJM199505183322001 |
Esquemas e tabelas
Concentração e diluente decidem quem vence a corrida entre trânsito e montagem.
| Fator | Efeito sobre a concentração efetiva | Efeito sobre a montagem | Observação clínica correspondente |
|---|---|---|---|
| Hematócrito alto | Aumenta | Acelera | Associado a taxas altas de dor |
| Hemoglobina fetal alta | Reduz e interrompe a fibra | Retarda | Associada a taxas baixas de dor |
| Hemoglobina normal (traço) | Reduz fortemente | Impede em condições habituais | Portador habitualmente assintomático |
| Desidratação celular | Aumenta | Acelera | Precipitante de crise |
| Desoxigenação prolongada | Não altera | Expõe a superfície e permite a montagem | Crise em território de fluxo lento |
O que o sistema purificado dá e o que não dá
| Pergunta | Sistema reconstituído | Por quê |
|---|---|---|
| A fibra existe? | Responde bem | O fenômeno aparece isolado, sem interferência |
| Depende da desoxigenação? | Responde bem | A variável pode ser controlada diretamente |
| A concentração governa a velocidade? | Responde bem | É possível variar concentração de forma sistemática |
| Qual será a gravidade deste paciente? | Responde mal | Faltam os parceiros que modulam o fenômeno na célula |
Um diagnóstico, comportamentos opostos
| Grupo dentro da anemia falciforme | Proporção de pacientes | Participação nos episódios |
|---|---|---|
| Sem nenhum episódio de dor | 39% | Nenhuma |
| Com 3 a 10 episódios por ano | 5,2% | 32,9% de todos os episódios |
| Com mais de seis episódios por ano | 1% | — |
- A hemoglobina fetal protege por não participar do polímero — o modulador atua por ausência de função.
- Taxa de crises não é apenas conforto: associou-se a morte mais precoce em maiores de 20 anos.
Onde se erra
- Pensar o enovelamento só como requisito do sítio ativo
- Ele também decide qual face a proteína mostra para a água.
- Supor que toda mutação relevante desfaz a estrutura
- Aqui o enovelamento se mantém e o que aparece é uma superfície nova.
- Procurar perda de função onde o defeito é de solubilidade
- A hemoglobina alterada continua transportando oxigênio.
- Imaginar agregação amorfa
- A fibra tem geometria definida, formada por encaixe complementar.
- Tratar a polimerização como constante
- Só a forma desoxigenada expõe a superfície crítica.
- Separar o evento molecular do vascular
- A célula endurece, obstrui, o fluxo cai e mais células desoxigenam.
- Tratar a falcização como evento imediato
- É uma corrida: se a célula reoxigenar a tempo, a fibra não se forma.
- Considerar a concentração intracelular um dado fixo
- Desidratação celular e hematócrito alto a elevam e aceleram a montagem.
- Tratar as outras hemoglobinas como espectadoras
- Elas diluem e interrompem a fibra justamente por não encaixarem.
- Explicar traço e doença por gravidade da mutação
- A mutação é a mesma; o que muda é a quantidade e, portanto, a concentração.
- Ler resultado in vitro como se as condições fossem as da célula
- O tubo não tem hemoglobina fetal, membrana, volume variável nem tempo de trânsito.
- Extrapolar magnitude clínica a partir de bancada
- O sistema purificado mostra o mecanismo em estado puro e prevê o pior caso.
- Esperar homogeneidade clínica a partir de homogeneidade genotípica
- 39% sem episódios e 5,2% com um terço de todos eles, no mesmo genótipo.
- Tratar a crise dolorosa apenas como problema de conforto
- Entre maiores de 20 anos, taxas altas associaram-se a morte mais precoce.
- Descartar como irrelevante o componente que não faz nada
- Aqui, o que protege é exatamente a molécula que não participa.
Roteiro do raciocínio
Do enovelamento à fibra, da fibra à heterogeneidade clínica, e daí ao limite do sistema purificado.
- 01Situar o enovelamento como criador de superfície
- 02Explicar a solubilidade pela distribuição dos aminoácidos
- 03Introduzir a troca de um aminoácido na superfície
- 04Separar função de solubilidade
- 05Montar a fibra por encaixe complementar
- 06Amarrar a montagem ao estado de oxigenação
- 07Localizar o evento na circulação
- 08Pensar o processo como corrida contra o tempo
- 09Identificar a concentração como alavanca
- 10Reconhecer o papel das outras hemoglobinas
- 11Explicar o traço pelo mesmo raciocínio
- 12Nomear a origem do conhecimento
- 13Explicitar o que um sistema purificado contém
- 14Deduzir o viés do sistema reconstituído
- 15Confrontar a previsão com a observação clínica
- 16Ler os fatores associados e o desfecho duro
- 17Derivar a intervenção do mecanismo e ler o ensaio
- 18Fechar a lição sobre o sistema purificado
Teste-se
Leve para o paciente
Menino de 6 anos é trazido pela família e a primeira coisa que você ouve é: "Doutor, o Davi está com muita dor nas duas pernas desde ontem e hoje nem quis levantar da cama." Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
O que mudou na proteína: função ou solubilidade? Por que só a forma desoxigenada polimeriza? Por que a hemoglobina fetal protege?
Explique por que um sistema purificado estabelece bem o mecanismo e prevê mal a gravidade clínica — e por que, neste caso, o modulador atua por ausência de função.