
Mecanismos de Doença e Infecção › A célula sob agressão
A morte silenciosa
Apoptose: a célula que se desmonta por dentro
Caspases cortam, fagócitos recolhem e a membrana contém o dano — até que o sistema falhe ou o contexto mude.
A cena
Durante a seleção de linfócitos, o desenvolvimento embrionário e a renovação do epitélio, células desnecessárias são eliminadas sem produzir uma área de necrose. Elas encolhem, condensam cromatina, fragmentam-se em corpos delimitados por membrana e são removidas por fagócitos.
Essa organização faz da apoptose uma forma geralmente pouco inflamatória de morte. 'Pouco inflamatória', porém, não significa invisível nem incapaz de influenciar imunidade: carga de células mortas, depuração deficiente, infecção, dano secundário de membrana e sinais associados modificam a resposta. A decisão pode começar dentro da mitocôndria, quando proteínas da família BCL-2 deixam BAX e BAK permeabilizar a membrana externa, ou na superfície, quando receptores de morte como FAS reúnem complexos ativadores de caspases.
As duas entradas convergem em proteases executoras que desmontam citoesqueleto, lâminas nucleares e proteínas de reparo. Endonucleases fragmentam DNA; fosfatidilserina se exterioriza e funciona como sinal para remoção. Doença aparece nos dois extremos. Apoptose insuficiente favorece sobrevivência de clones neoplásicos ou linfócitos autorreativos; apoptose excessiva contribui para perda celular em algumas doenças neurodegenerativas, infecções e isquemia.
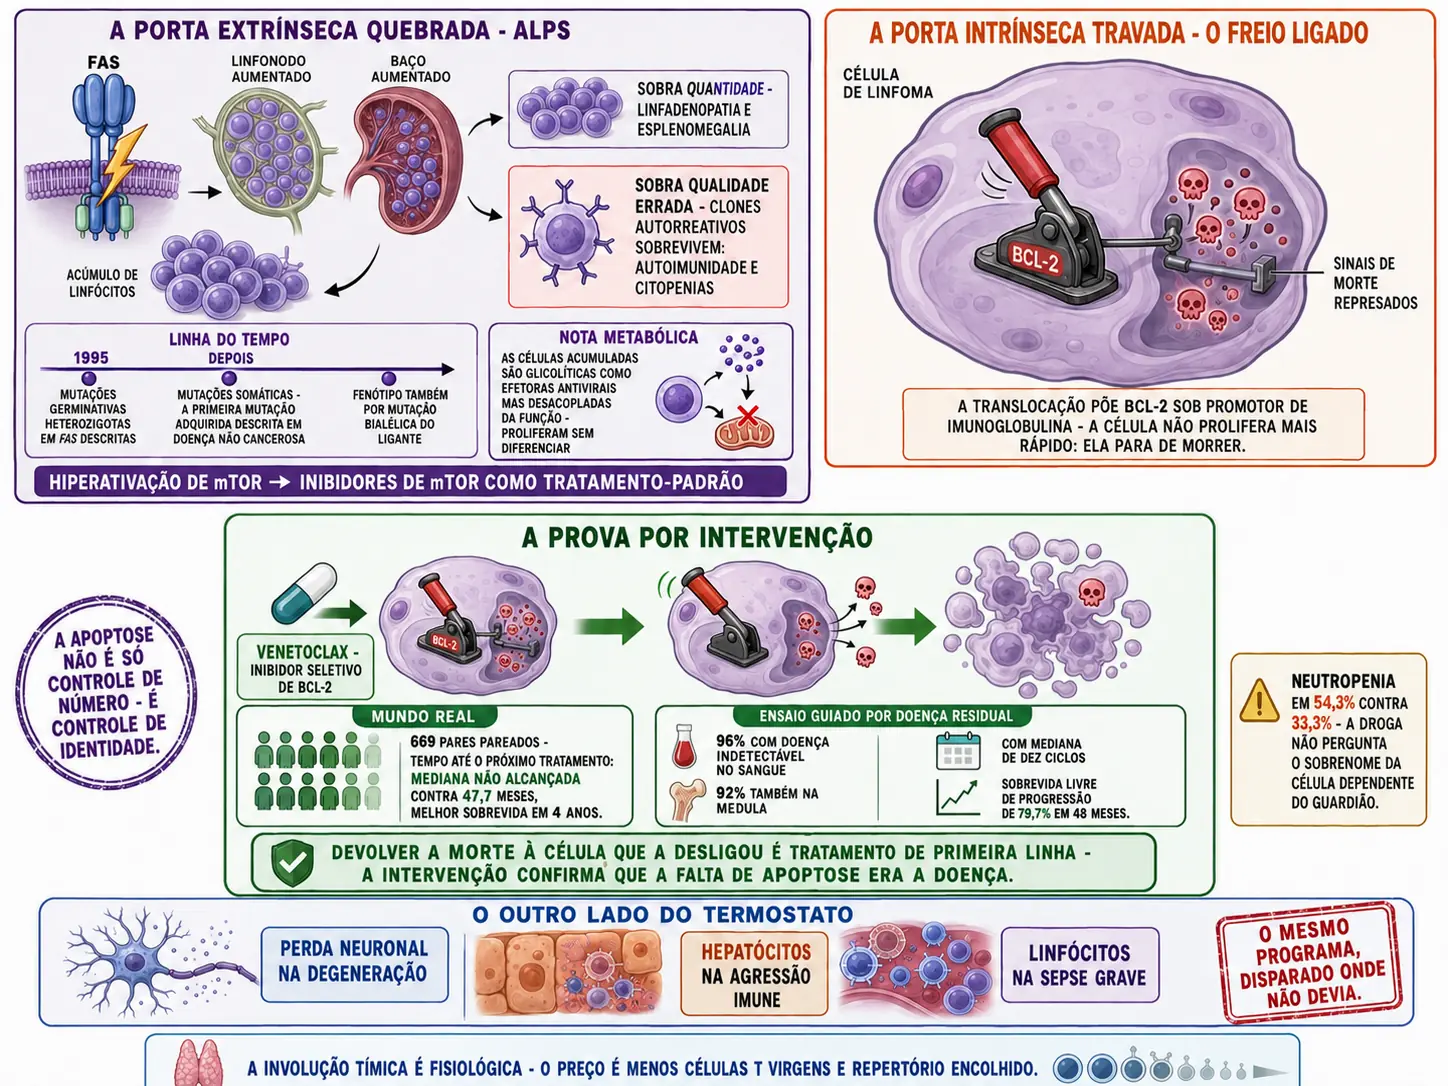
Defeitos de FAS na síndrome linfoproliferativa autoimune e o bloqueio terapêutico de BCL-2 mostram como o mecanismo de morte explica doença e resposta ao tratamento. Eles também lembram que nenhuma molécula age isoladamente: tipo celular, dependência antiapoptótica e resistência alteram o efeito.
O mecanismo
Apoptose é morte celular regulada com ativação de uma maquinaria proteolítica e morfologia característica. O termo não deve ser usado como sinônimo de toda morte programada; existem outras vias reguladas com executores e consequências diferentes. A via intrínseca integra dano ao DNA, privação de fatores de crescimento e estresse celular. Quando o balanço da família BCL-2 favorece BAX e BAK, a mitocôndria libera citocromo c e a célula entra na cascata de execução.
O ponto útil para a Patologia é o balanço: proteínas antiapoptóticas, como BCL-2, elevam o limiar de morte; sinais pró-apoptóticos reduzem esse limiar e favorecem a permeabilização mitocondrial. Esse equilíbrio varia entre tecidos e tumores. Por isso, aumento de BCL-2 pode prolongar a sobrevivência celular sem aumentar diretamente a proliferação, e também pode criar uma vulnerabilidade terapêutica.
O citocromo c liberado pela mitocôndria ativa uma caspase iniciadora e, em seguida, caspases executoras. Para interpretar o tecido, importa relacionar essa sequência à retração celular, à condensação da cromatina e à fragmentação contida por membrana. Dano ao DNA ativa respostas que incluem p53. Conforme intensidade, reparabilidade e contexto, p53 pode deter o ciclo, favorecer reparo, induzir senescência ou aumentar proteínas pró-apoptóticas. p53 não é um 'botão de apoptose' com uma única saída.
A via extrínseca começa em receptores de morte na superfície, especialmente FAS. A ligação ao seu ligante organiza adaptadores e ativa caspase-8; defeitos nessa etapa ajudam a explicar a persistência anormal de linfócitos no ALPS. A via do receptor pode ativar diretamente a execução ou amplificar a via mitocondrial. As duas entradas, portanto, convergem e não devem ser tratadas como circuitos absolutamente isolados. As caspases são sintetizadas como zimogênios. Iniciadoras ativam executoras, que clivam centenas de substratos. A célula encolhe, perde aderência, forma blebs, condensa cromatina e se fragmenta em corpos apoptóticos.
A família BCL-2 controla o limiar mitocondrial por interações, não por uma fila linear. Proteínas BH3-only respondem a estresses distintos e neutralizam proteínas antiapoptóticas ou favorecem BAX/BAK; BCL-2, BCL-XL e MCL-1 sequestram parceiros pró-apoptóticos com afinidades diferentes. Quando BAX e BAK oligomerizam, a permeabilização da membrana externa mitocondrial libera citocromo c e costuma comprometer de modo decisivo a sobrevivência. O chamado priming mitocondrial expressa quão perto a célula está desse limiar e ajuda a explicar respostas desiguais ao mesmo fármaco.
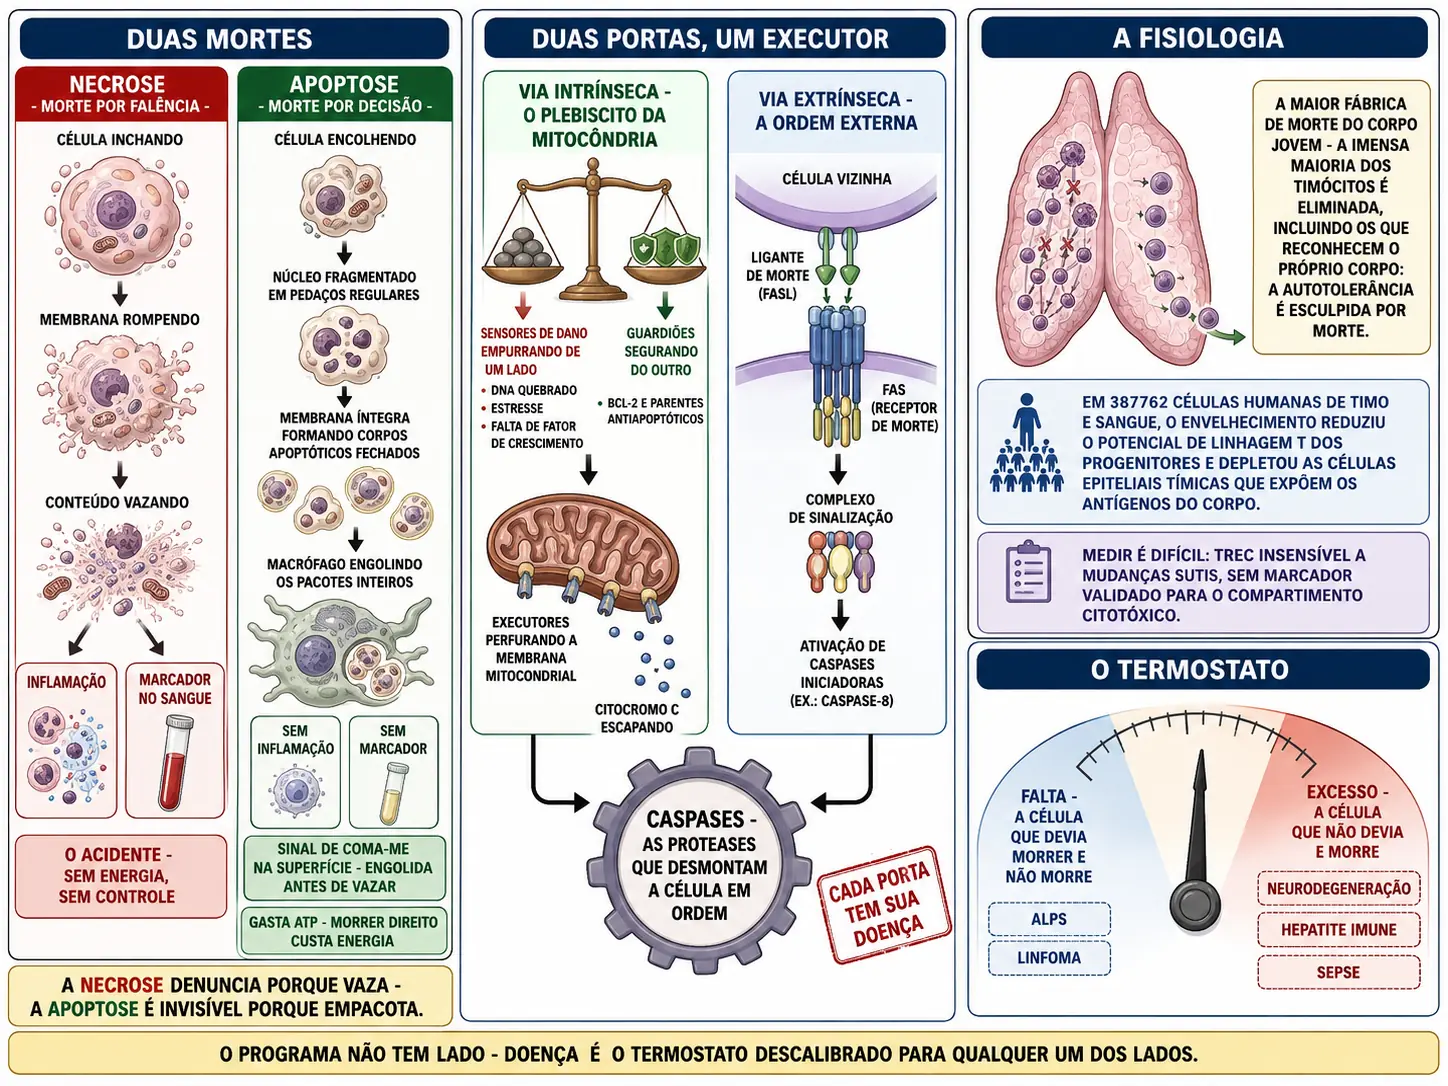
A execução cliva proteínas estruturais e nucleares e pode fragmentar o DNA. Na amostra clínica, porém, a morfologia e o contexto são mais importantes que demonstrar cada componente molecular da cascata. Fosfatidilserina, normalmente voltada para a face citosólica, torna-se exposta. Receptores diretos e moléculas ponte permitem que macrófagos e células vizinhas reconheçam e engolfem os corpos antes de seu conteúdo escapar.
A remoção eficiente é acompanhada por sinais que limitam inflamação e promovem resolução. Se a capacidade fagocítica é excedida ou falha, corpos apoptóticos podem evoluir para necrose secundária e liberar conteúdo potencialmente imunogênico. Apoptose fisiológica ocorre na embriogênese, involução dependente de hormônio, renovação de tecidos e término de respostas imunes. Em muitos desses cenários, uma célula isolada desaparece sem alterar a arquitetura ao redor.
Apoptose patológica elimina células com dano irreparável ao DNA, proteínas muito mal dobradas ou infecção. Alguns vírus bloqueiam a via para prolongar a própria replicação; linfócitos citotóxicos podem induzir morte por granzimas e pela via FAS. Na síndrome linfoproliferativa autoimune, defeitos na via FAS comprometem a contração de populações linfocitárias e favorecem linfadenopatia, esplenomegalia e autoimunidade. A clínica não resulta simplesmente de 'falta de inflamação', mas de falha de homeostase imune. Venetoclax inibe BCL-2. A resposta depende de o tumor usar essa proteína para sobreviver; mecanismos alternativos de sobrevivência e seleção clonal podem produzir resistência.
Necroptose, piroptose e ferroptose não são subtipos de apoptose. Elas compartilham pontos de conversa e podem ocorrer no mesmo tecido, mas executores, morfologia e sinalização inflamatória diferem. Essa comparação evita reduzir toda morte regulada a caspases. Em material histológico, apoptose é inferida por células retraídas, cromatina condensada, fragmentos delimitados e fagocitose, frequentemente sem grande halo inflamatório. TUNEL e caspase clivada apoiam a análise, mas têm limitações de especificidade e técnica.
A via extrínseca também decide entre destinos concorrentes. No complexo formado por FAS, FADD aproxima procaspases-8; a quantidade de c-FLIP e o estado de caspase-8 modulam se o sinal progride para apoptose. Caspase-8 ativa pode clivar BID e amplificar MOMP, mas também restringe a montagem do complexo RIPK1-RIPK3 que conduz à necroptose. Assim, bloquear caspases não preserva obrigatoriamente a célula: em certos contextos, apenas desloca a execução para uma morte com perda de membrana e maior inflamação.
A contenção depende da eferocitose. Fosfatidilserina exposta é reconhecida diretamente ou por proteínas-ponte, enquanto sinais solúveis atraem fagócitos. Macrófagos que engolfam corpos apoptóticos tendem a produzir mediadores de resolução e a limitar apresentação inflamatória de autoantígenos. Se a carga ultrapassa a capacidade de remoção, se a fagocitose é defeituosa ou se o tecido não dispõe de acesso fagocítico, a membrana acaba se rompendo em necrose secundária. A mesma apoptose pode, portanto, permanecer silenciosa ou tornar-se imunologicamente relevante conforme o destino do cadáver.
Na amostra, método e tempo impedem equivalências simples. TUNEL marca quebras de DNA, que também aparecem em necrose e reparo; anexina V reconhece fosfatidilserina, mas células com membrana perdida permitem acesso inespecífico; caspase-3 clivada demonstra ativação executora, não necessariamente a única causa da perda celular. A inferência mais forte combina retração celular, cromatina condensada, corpos delimitados, integridade inicial de membrana, localização no tecido e marcadores complementares. Um resultado isolado descreve uma propriedade, não toda a via.
Perguntas que o mecanismo precisa responder
Use estas perguntas para ligar o mecanismo patológico à morfologia, à disfunção do órgão e às decisões clínicas.
“Qual estresse elevou o sinal pró-apoptótico?”
Dano ao DNA, privação trófica, estresse proteico e receptores de morte entram por sensores diferentes.
“O limiar mitocondrial foi ultrapassado?”
O balanço entre sinais pró-apoptóticos e antiapoptóticos determina se a mitocôndria libera citocromo c.
“A via começou no interior ou em um receptor de morte?”
A via mitocondrial e a ativação pelo receptor FAS são entradas distintas que podem convergir na cascata de caspases.
“A execução ocorreu com membrana ainda contida?”
Corpos membranosos e remoção rápida reduzem o extravasamento que caracteriza necrose.
“A depuração acompanhou a quantidade de células mortas?”
Sobrecarga ou falha fagocítica permite necrose secundária e muda a resposta imune.
“A doença decorre de apoptose insuficiente ou excessiva?”
Neoplasia e autoimunidade podem refletir falha de eliminação; perda tecidual pode refletir ativação excessiva.
O que determina o desfecho
- Regulada não significa apoptótica
- Necroptose, piroptose e ferroptose também são mortes reguladas.
- Silenciosa é uma tendência
- Depuração eficaz costuma limitar inflamação; contexto e necrose secundária podem mudar o resultado.
- A mitocôndria marca a decisão
- Depois de extensa permeabilização mitocondrial e ativação das caspases, a recuperação torna-se improvável.
- Caspase é família, não uma enzima
- Caspases iniciadoras e executoras ocupam posições diferentes na cascata.
- p53 tem várias saídas
- Parada do ciclo, reparo, senescência e apoptose dependem do dano e do contexto.
- Teste também tem limite
- TUNEL detecta quebras de DNA e caspase clivada depende de tempo e preservação; nenhum marcador isolado é perfeito.
O mecanismo em sequência
Reconstrua a cadeia causal sem transformar associação em regra diagnóstica.
- 1
Defina o estímulo
Separe dano interno, perda de fatores tróficos, estresse proteico e receptor de morte.
Erro comum: Começar pelas caspases sem explicar quem as ativou.
- 2
Identifique a célula
Considere sua dependência de fatores de sobrevivência e proteínas antiapoptóticas.
Erro comum: Supor o mesmo limiar em todos os tecidos.
- 3
Mapeie sensores
Relacione dano ao DNA, privação trófica ou estresse proteico à decisão de morrer.
Erro comum: Tratar p53 como sinônimo de apoptose.
- 4
Avalie o limiar de sobrevivência
Pergunte se predominam sinais de sobrevivência ou sinais que liberam a via mitocondrial.
Erro comum: Dizer que BCL-2 é oncogene porque aumenta proliferação diretamente.
- 5
Reconheça a via mitocondrial
Conecte a liberação de citocromo c à ativação das caspases e à morfologia apoptótica.
Erro comum: Confundir membrana mitocondrial externa com ruptura plasmática.
- 6
Siga a cascata de caspases
Diferencie caspases iniciadoras de executoras e relacione-as às alterações morfológicas.
Erro comum: Pular da mitocôndria para fragmentação do DNA.
Duas doenças da falta — FAS quebrado e BCL-2 travado — e a droga que devolve a morte como prova de mecanismo. - 7
Trace a via extrínseca
Conecte FAS/FASL, FADD e caspase-8.
Erro comum: Afirmar que todo receptor TNF produz sempre apoptose.
- 8
Mostre a convergência
Relacione as duas vias às caspases executoras e à desmontagem celular.
Erro comum: Apresentar vias como independentes em qualquer célula.
- 9
Leia a morfologia
Procure retração, cromatina condensada, blebs e corpos membranosos.
Erro comum: Usar apenas ausência de inflamação para diagnosticar apoptose.
- 10
Verifique a depuração
Explique fosfatidilserina, fagocitose e resolução.
Erro comum: Ignorar o destino dos corpos apoptóticos.
- 11
Teste o desfecho imune
Considere carga, contexto infeccioso e necrose secundária.
Erro comum: Prometer silêncio inflamatório absoluto.
- 12
Traduza a doença
Pergunte se o defeito está no gatilho, na decisão, na execução ou na remoção.
Erro comum: Reduzir ALPS ou resistência tumoral a uma única seta.
O que o processo produz
- Equilíbrio entre sobrevivência e eliminação conforme necessidade do tecido.
- Membrana plasmática preservada durante a fragmentação inicial.
- Fosfatidilserina confinada à face interna antes do sinal de remoção.
- Células apoptóticas rapidamente fagocitadas, sem acúmulo de detritos.
- Arquitetura do tecido preservada ao redor de células isoladas eliminadas.
- Célula retraída e intensamente eosinofílica
- Perda de volume e condensação de proteínas durante execução apoptótica.
- Cromatina periférica condensada
- Clivagem de substratos nucleares e reorganização da cromatina.
- Corpos apoptóticos delimitados por membrana
- Fragmentação ordenada que contém componentes intracelulares.
- Caspase executora clivada
- Evidência de ativação executora, dependente do momento e da técnica.
- TUNEL positivo
- Quebras de DNA; apoia apoptose, mas não é absolutamente específico.
- Acúmulo de linfócitos duplo-negativos em contexto de ALPS
- Falha da homeostase por defeito da via FAS, dentro do quadro clínico apropriado.
- Expressão ou dependência elevada de BCL-2
- Limiar apoptótico aumentado e possível vulnerabilidade a inibidor seletivo.
- Necrose secundária
- Célula apoptótica não removida perde membrana e pode liberar sinais inflamatórios.
- Células retraídas, intensamente eosinofílicas, com cromatina condensada e fagocitose rápida
- Morfologia apoptótica; a ausência de grande reação ao redor depende de membrana contida e eferocitose eficiente.
- Fragmentos apoptóticos acumulados com perda posterior de membrana e inflamação
- Depuração insuficiente permite necrose secundária e exposição de autoantígenos, modificando a consequência imune da morte.
Por que isso importa
A apoptose liga controle de qualidade celular, desenvolvimento e imunidade. Sua relevância clínica aparece quando células perigosas sobrevivem ou quando células necessárias são eliminadas em excesso. Em oncologia, expressão de BCL-2 pode prolongar a sobrevivência sem ser um motor direto de proliferação. Isso permite que outros eventos clonais se acumulem e também cria dependência terapêutica em alguns tumores.
Venetoclax libera proteínas pró-apoptóticas sequestradas por BCL-2. A lise tumoral rápida é consequência clínica dessa restauração de morte em grande massa celular, o que exige prevenção e monitorização apropriadas. Resistência pode ocorrer quando o tumor passa a depender de outros sinais de sobrevivência ou seleciona clones menos dependentes de BCL-2. Um alvo molecular correto não garante resposta uniforme.
No ALPS, a falha de FAS prejudica a eliminação de linfócitos ativados. Linfadenopatia crônica não maligna, esplenomegalia, citopenias autoimunes e risco de linfoma formam uma ponte entre receptor de morte e fenótipo. Na hepatite viral, linfócitos citotóxicos induzem apoptose de hepatócitos infectados; os corpos acidofílicos podem ser vistos na histologia. A resposta elimina reservatórios, mas também contribui para a lesão do órgão. Em neurodegeneração e isquemia, vias apoptóticas podem participar da perda celular, frequentemente junto de necrose e outras mortes reguladas. A coexistência impede interpretar todo neurônio perdido por uma única via.
A ausência de grande infiltrado ao redor de uma célula retraída sustenta apoptose, mas não é critério isolado. Morfologia, localização, marcadores e qualidade da amostra devem convergir. A exteriorização de fosfatidilserina é usada em ensaios como anexina V, mas membranas em necrose também podem permitir ligação. Combinar marcadores de integridade melhora a distinção em experimentos.
A ponte essencial é esta: o estímulo define a via de entrada, o balanço entre sobrevivência e morte define a decisão, caspases produzem a morfologia e fagócitos determinam se a remoção permanecerá contida. Cada etapa pode ser alterada por doença ou tratamento.
Apoptose, necroptose e piroptose podem terminar em perda celular, mas deixam repercussões teciduais diferentes. A primeira tende a preservar a membrana até a depuração; as outras liberam conteúdo e amplificam inflamação. Em infecções e tumores, bloquear uma via pode deslocar a célula para outra forma de morte, razão pela qual caspase, morfologia e infiltrado precisam ser interpretados como conjunto, e não como sinônimos. Na prática, essas vias se cruzam: inibição de caspases pode favorecer necroptose, inflamassoma ativo pode ligar piroptose à liberação de IL-1, e isquemia intensa pode combinar padrões numa mesma área. A classificação, portanto, deve registrar o fenótipo predominante e a evidência molecular disponível, sem fingir exclusividade que a biologia não oferece.
Esquemas e comparações
As tabelas organizam relações; não substituem tempo, contexto e morfologia.
Duas entradas, uma execução
| Componente | Via intrínseca | Via extrínseca |
|---|---|---|
| Gatilho | Dano ao DNA, privação trófica, estresse de organelas | Ligantes de receptores de morte |
| Plataforma | Liberação mitocondrial de citocromo c | Ativação pelo receptor FAS |
| Caspase iniciadora | 9 | 8 ou 10 |
| Convergência | Caspases 3/7 | Caspases executoras |
Apoptose e outras mortes reguladas
| Via | Executor central | Membrana/Inflamação |
|---|---|---|
| Apoptose | Caspases executoras | Contida e geralmente pouco inflamatória |
| Necroptose | RIPK3/MLKL | Ruptura e inflamação |
| Piroptose | Gasderminas | Poros, ruptura e mediadores inflamatórios |
| Ferroptose | Peroxidação lipídica | Dano de membranas dependente do contexto |
- A classificação mecanística exige mais que morfologia de rotina.
- Apoptose tende a ser pouco inflamatória quando a membrana permanece contida e a depuração é eficiente.
Armadilhas de interpretação
- Apoptose nunca inflama
- Depuração deficiente, necrose secundária, infecção e carga elevada podem modificar a resposta.
- Programada = apoptose
- Há várias formas reguladas de morte com executores distintos.
- p53 manda sempre morrer
- p53 também pode deter ciclo, favorecer reparo ou senescência.
- BCL-2 faz a célula proliferar
- Seu papel clássico é elevar o limiar de morte e prolongar sobrevivência.
- FAS age sozinho
- Adaptadores, caspases e moduladores intracelulares determinam o resultado.
- TUNEL é específico
- Outros processos com quebra de DNA podem produzir positividade.
- Ausência de neutrófilos basta
- É preciso reconhecer a morfologia e considerar o momento da amostra.
- Um inibidor de BCL-2 serve para todo tumor
- A dependência antiapoptótica varia e resistência é comum.
Teste-se
Ponte para o atendimento
Adolescente de 15 anos chega ao ambulatório e a primeira coisa que você ouve é: "Doutor, esses caroços no meu pescoço voltaram a crescer e me mandaram investigar direito dessa vez." Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
Desenhe as vias intrínseca e extrínseca até as caspases executoras e relacione cada etapa à morfologia, à inflamação e a um exemplo de doença.
Compare ALPS e uma neoplasia dependente de BCL-2: em ambos há sobrevida celular excessiva, mas a falha e a consequência clínica são diferentes.