
Morfologia › Fundamentos da forma
Músculo
Três contrações diferentes e três reparos diferentes
O caso
Dois pacientes perderam massa muscular parecida. O primeiro, 24 anos, rompeu o gastrocnêmio jogando futebol: teve dor intensa, edema, incapacidade de apoiar o pé — e, quatro meses depois, voltou a correr com o músculo funcionando.
O segundo, 62 anos, teve um infarto que destruiu uma área do miocárdio de tamanho comparável. Passados quatro meses, aquela região não voltou. Ela virou cicatriz, e vai continuar cicatriz pelo resto da vida dele.
Os dois são músculo. Os dois contraem. E os dois têm desfechos opostos diante de perda semelhante. A diferença não está na gravidade da lesão nem na idade dos pacientes — está no tipo de músculo, e mais precisamente na capacidade de repor células que cada tipo tem. É essa capacidade que este capítulo vai medir.
Da origem ao mapa do corpo
Ato 1 — Embriologia.
Mesoderma paraxial produz a maior parte do músculo esquelético, enquanto músculo liso e cardíaco seguem programas próprios; a origem ajuda a entender disposição segmentar e migração.
Ato 2 — Histologia.
Actina e miosina são comuns, mas sarcômeros, núcleos, junções e controle distinguem músculo esquelético, cardíaco e liso em uma lâmina.
Os três tipos de músculo resolvem problemas diferentes, e por isso têm arquiteturas diferentes. Vale começar pelo que eles têm em comum, porque é a partir daí que as diferenças fazem sentido.
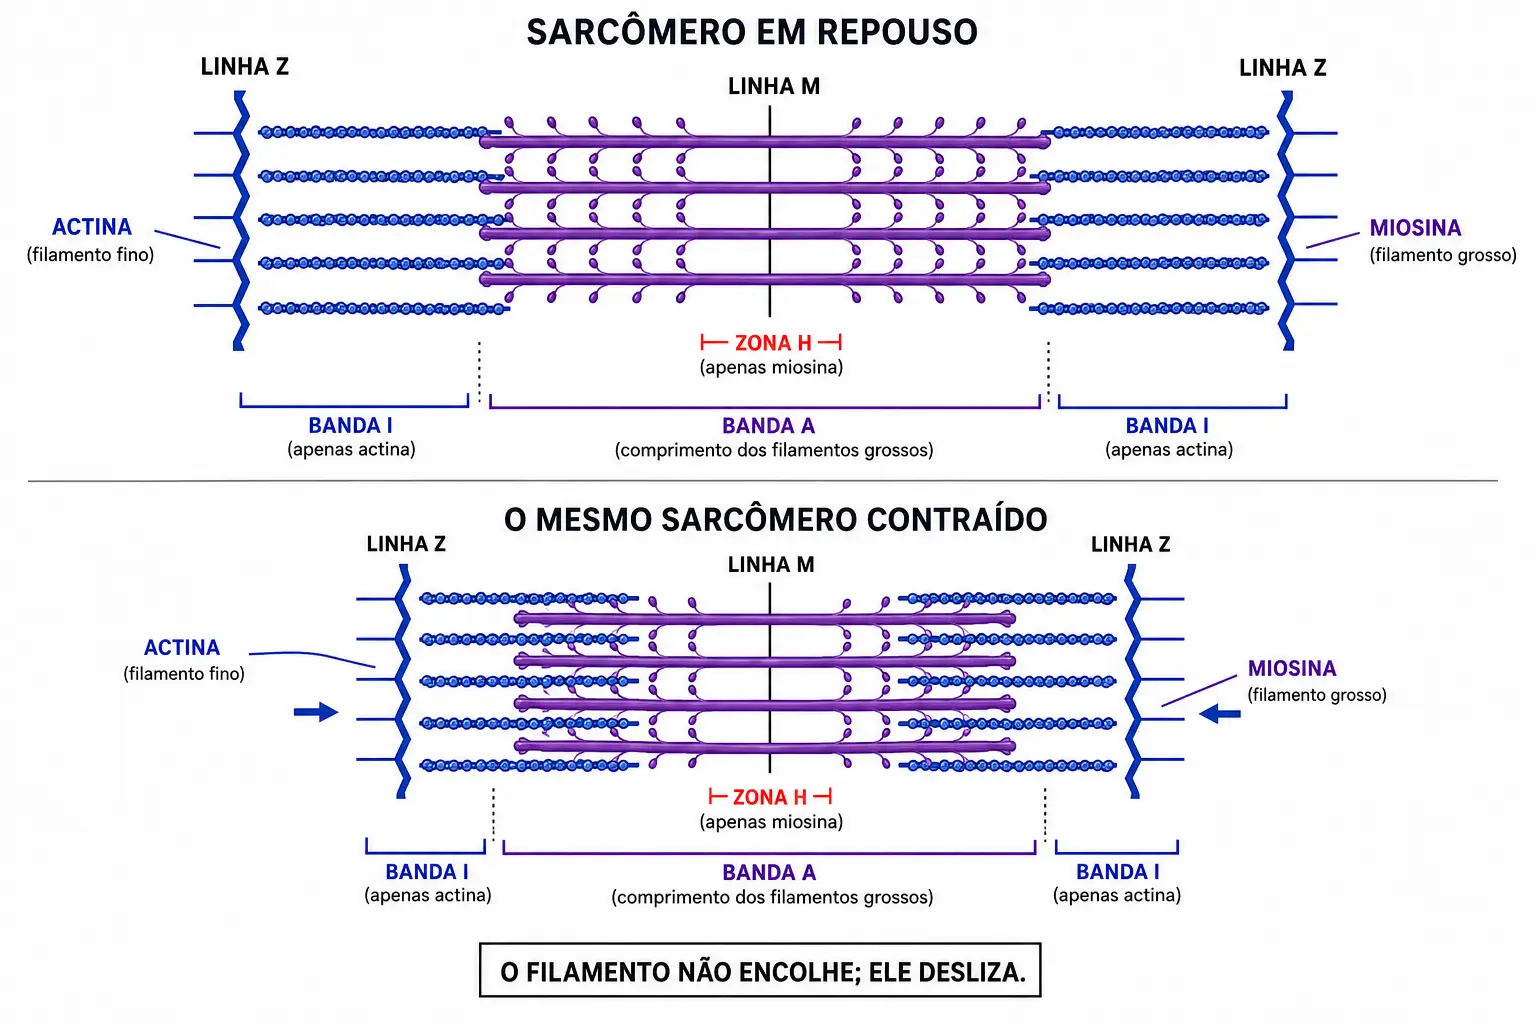
Todo músculo contrai pelo mesmo princípio: filamentos de actina e de miosina deslizando uns sobre os outros, encurtando a distância entre pontos de ancoragem. Nada se encolhe — tudo desliza. O que varia entre os três tipos é como esses filamentos estão organizados e quem dá a ordem.
No músculo esquelético, a organização é máxima. Os filamentos se arranjam em unidades repetidas chamadas sarcômeros, delimitadas por linhas Z, e os sarcômeros se alinham lado a lado ao longo de toda a célula. É esse alinhamento em registro que produz a estriação transversal visível ao microscópio: as bandas não são estruturas próprias, são o efeito óptico da regularidade.
A célula do músculo esquelético é peculiar: ela é multinucleada, com dezenas a centenas de núcleos empurrados para a periferia. Isso não é acidente — ela se forma pela fusão de várias células precursoras, os mioblastos, em uma única fibra alongada. Um único núcleo não daria conta de sustentar o volume citoplasmático de uma célula que pode ter vários centímetros de comprimento.
O controle é voluntário, e a unidade funcional não é a fibra, e sim a unidade motora: um motoneurônio e todas as fibras que ele inerva. Quando o neurônio dispara, todas as suas fibras contraem — não existe contração parcial de uma unidade motora.
Daí decorre como a força é graduada, e vale entender porque é contraintuitivo: não se contrai mais forte uma fibra, recruta-se mais unidades motoras. Músculos que precisam de precisão fina, como os que movem o olho, têm unidades motoras com pouquíssimas fibras cada; músculos de força bruta, como o glúteo máximo, têm unidades motoras com centenas de fibras.
No músculo cardíaco, a organização dos sarcômeros é igualmente regular — por isso ele também é estriado —, mas tudo o mais muda. As células são ramificadas, mais curtas, e têm um ou dois núcleos centrais em vez de muitos periféricos.
E há a estrutura que define o tecido: o disco intercalar, a junção entre células cardíacas vizinhas. Ele contém dois tipos de conexão com funções distintas. Desmossomos e junções aderentes seguram mecanicamente as células, impedindo que se separem sob tração repetida. E junções comunicantes abrem canais que deixam íons passarem diretamente de uma célula para a outra.
A consequência das junções comunicantes é decisiva: o coração se comporta como um sincício funcional. Um estímulo que despolarize uma célula se propaga às vizinhas sem precisar de nervo, o que faz o miocárdio contrair como uma unidade. Não existe recrutamento gradual de unidades motoras no coração — ou contrai tudo, ou não contrai.
Some-se que o músculo cardíaco tem automatismo: ele gera o próprio estímulo, e a inervação apenas modula frequência e força. Um coração denervado continua batendo; um músculo esquelético denervado não faz nada.
No músculo liso, a lógica é outra desde a arquitetura. As células são fusiformes, com um único núcleo central, e os filamentos de actina e miosina existem — mas não estão organizados em sarcômeros alinhados. Eles se dispõem obliquamente, ancorados em corpos densos espalhados pelo citoplasma e na membrana.
É por isso que o músculo liso não é estriado: sem sarcômeros em registro, não há o padrão óptico de bandas. A ausência de estriação não significa ausência de filamentos — significa ausência de alinhamento.
Esse arranjo oblíquo tem uma vantagem funcional. Ele permite que a célula encurte muito mais que uma fibra estriada, e que gere tensão sustentada com baixo consumo energético. É a solução certa para um tecido que precisa manter tônus por horas — como a parede de um vaso ou de uma víscera oca — e não para um que precisa de contração rápida e precisa.
O controle do liso é involuntário, por sistema nervoso autônomo, hormônios e estímulos locais como estiramento. Muitos músculos lisos também têm células com automatismo e junções comunicantes, funcionando parcialmente como sincício — o que explica a onda peristáltica.
Até aqui, três lógicas de contração. Agora o assunto que dá o segundo verbo do subtítulo, e que responde à cena de abertura: os três tipos também têm três capacidades diferentes de repor células perdidas.
O esquelético regenera. Isso se deve a uma população de células-tronco chamadas células satélites, que ficam entre a lâmina basal e a membrana da fibra, quiescentes. Diante de lesão, elas proliferam, fundem-se entre si ou com a fibra danificada e reconstroem tecido muscular funcional.
É por isso que a laceração do primeiro paciente da cena voltou a funcionar. Note, porém, o limite: se a lesão destrói também a lâmina basal e o arcabouço conjuntivo que guia as células satélites, o desfecho passa a ser cicatriz — exatamente as duas condições de regeneração que o capítulo do conjuntivo estabeleceu.
O liso pode proliferar. Suas células mantêm capacidade de divisão e podem aumentar em número, além de aumentar em tamanho. É por isso que a parede de um vaso ou de uma víscera oca pode se espessar de forma adaptativa — e é por isso que essa mesma capacidade participa de processos de remodelamento patológico.
E o cardíaco é o caso interessante, porque a resposta mudou. O ensino tradicional afirmava, de forma absoluta, que cardiomiócitos não se dividem e que o coração que temos é o que nascemos — e essa afirmação era difícil de testar, porque não havia como datar uma célula dentro de um ser humano vivo.
A solução veio de um lugar improvável. Os testes de bombas nucleares atmosféricas durante a Guerra Fria elevaram o carbono-14 da atmosfera, e depois do tratado que os proibiu essa concentração começou a cair de forma conhecida. Como o carbono da atmosfera entra na cadeia alimentar e é incorporado ao DNA no momento em que uma célula se divide, a quantidade de carbono-14 no DNA de uma célula registra a data em que ela nasceu.
Aplicado a corações humanos, esse método mostrou que cardiomiócitos se renovam, com queda gradual de 1% ao ano aos 25 anos para 0,45% ao ano aos 75. E que menos de 50% dos cardiomiócitos são trocados ao longo de uma vida normal.
Leia esses números pelos dois lados, porque os dois importam. Contra o ensino tradicional, a capacidade existe — não é zero, e os próprios autores concluem que isso torna racional buscar estratégias terapêuticas que estimulem esse processo em doenças cardíacas.
E a favor da observação clínica: 1% ao ano não repõe um infarto. Um infarto destrói uma quantidade enorme de cardiomiócitos em horas. Uma taxa de reposição que levaria décadas para renovar metade do órgão não tem como cobrir essa perda em tempo útil — e o espaço é ocupado por tecido conjuntivo, que está sempre disponível.
Essa é a explicação completa da cena de abertura, e ela usa exatamente a regra do capítulo do conjuntivo: quando a reposição do parênquima não dá conta, quem preenche é o reparo. A diferença entre o gastrocnêmio e o miocárdio não é que um regenera e o outro não regenera nada — é que a velocidade de reposição de um é compatível com a perda, e a do outro não é.
Vale registrar o alcance do método. A datação por carbono-14 mede quando o DNA foi sintetizado, o que permite estimar taxas de renovação em populações celulares — mas é uma estimativa populacional, obtida de tecido humano post mortem, e depende de premissas sobre a incorporação do carbono. Ela estabelece com solidez que a renovação existe e que é lenta; não descreve o que acontece em um coração doente específico.
Fecha o capítulo a amarração com os dois anteriores. No conjuntivo, vimos que manter a matriz é um processo contínuo. No osso, que a manutenção exige demolição. Aqui, que a capacidade de repor células define o que sobra depois de uma lesão — e que a diferença entre regenerar e cicatrizar pode ser apenas uma questão de velocidade.
Ato 3 — Anatomia.
A arquitetura macroscópica transforma contração em movimento: fibras formam fascículos, fascículos formam músculos e o tecido conjuntivo contínuo transmite força ao tendão.
O que a forma explica
Seis perguntas que identificam o tipo, explicam a lógica de contração e preveem o desfecho de uma lesão.
“Há estriação transversal?”
Estriação indica sarcômeros alinhados em registro — presente no esquelético e no cardíaco, ausente no liso, cujos filamentos são oblíquos.
“O núcleo é periférico e múltiplo, ou central e único?”
Multinucleado periférico indica esquelético, formado por fusão de mioblastos; um a dois núcleos centrais indicam cardíaco; núcleo único central em célula fusiforme indica liso.
“Há disco intercalar?”
É o achado decisivo do cardíaco, e o que separa os dois estriados. Ele contém adesão mecânica e junções comunicantes ao mesmo tempo.
“Quem dá a ordem de contrair?”
Motoneurônio no esquelético, automatismo próprio no cardíaco, autonômico e estímulos locais no liso. Determina o que acontece se a inervação for perdida.
“Como a força é graduada neste tecido?”
No esquelético, por recrutamento de mais unidades motoras — nunca por contração parcial de uma fibra. No cardíaco não há gradação por recrutamento: o sincício contrai junto.
“Este tecido consegue repor as células perdidas na velocidade em que as perdeu?”
É a pergunta que decide entre regeneração e cicatriz. Célula satélite repõe rápido; 1% ao ano não cobre um infarto.
Como se orientar
- Procurar estriação em pequeno aumento
- O padrão de bandas é um efeito de regularidade e aparece melhor no conjunto. Em aumento alto perde-se a percepção do registro entre fibras vizinhas.
- Localizar os núcleos antes de decidir
- Posição e número de núcleos separam os dois estriados mais rápido do que qualquer outro achado depois da estriação.
- Procurar o disco intercalar em corte longitudinal
- Ele atravessa a fibra transversalmente e só é reconhecível quando o corte acompanha o eixo longo da célula.
- Ter em mente que ausência de estriação não é ausência de filamento
- O músculo liso tem actina e miosina; o que falta é o alinhamento em sarcômeros. Sem isso, não há padrão óptico de bandas.
- Relacionar arquitetura com a exigência funcional
- Contração rápida e precisa exige sarcômero organizado; tônus sustentado e econômico é melhor servido por filamentos oblíquos.
- Separar capacidade de reposição de velocidade de reposição
- A distinção resolve o caso do coração: a capacidade existe e é lenta demais para a perda que o infarto produz.
A leitura
Identificar o tipo, deduzir a lógica de contração a partir da arquitetura, e prever o que sobra depois de uma lesão.
- 1
Verificar presença de estriação transversal
Estriação decorre de sarcômeros alinhados em registro entre fibras vizinhas. Presente nos dois estriados, ausente no liso.
Erro comum: Concluir pela estriação isoladamente — ela não separa esquelético de cardíaco.
- 2
Avaliar número e posição dos núcleos
Muitos núcleos periféricos indicam esquelético; um a dois centrais indicam cardíaco; núcleo único central em célula fusiforme indica liso.
Erro comum: Ignorar a posição do núcleo, que é o segundo critério mais rápido depois da estriação.
- 3
Procurar ramificação e disco intercalar
Células ramificadas unidas por discos intercalares transversais confirmam cardíaco. É o achado decisivo entre os dois estriados.
Erro comum: Procurar disco intercalar em corte transversal, onde ele não é reconhecível.
- 4
Reconhecer o sarcômero como unidade repetida
Entre duas linhas Z, com banda A de tamanho fixo e banda I e zona H que diminuem na contração. Os filamentos deslizam, não encurtam.
Erro comum: Imaginar que os filamentos se encolhem — o que torna incompreensível a banda A permanecer constante.
- 5
Identificar a unidade motora no esquelético
Um motoneurônio e todas as fibras que ele inerva. Quando dispara, todas contraem; não há contração parcial de uma unidade motora.
Erro comum: Tratar a fibra isolada como unidade funcional, o que impede entender como a força é graduada.
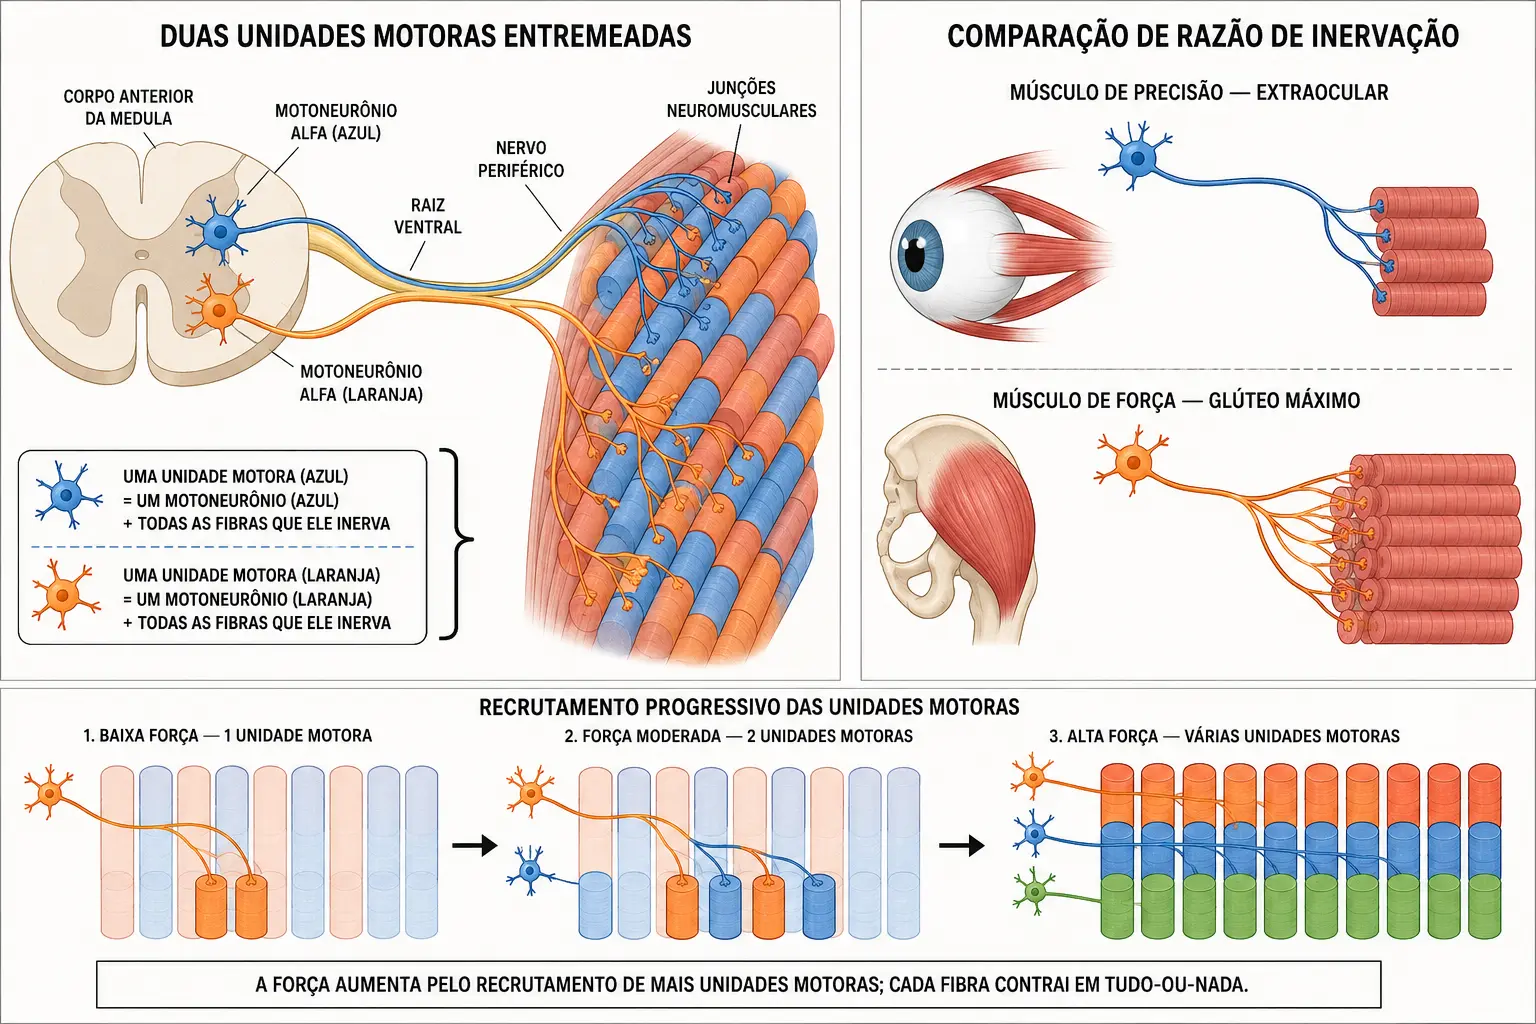
A unidade motora é a unidade funcional, não a fibra. A força se gradua recrutando mais unidades — e a precisão depende de quantas fibras cada unidade controla. - 6
Entender o disco intercalar como duas funções em uma estrutura
Desmossomos e junções aderentes seguram mecanicamente; junções comunicantes deixam íons passarem entre células, produzindo sincício funcional.
Erro comum: Descrever o disco intercalar apenas como junção de adesão, perdendo a propriedade que faz o coração contrair como unidade.
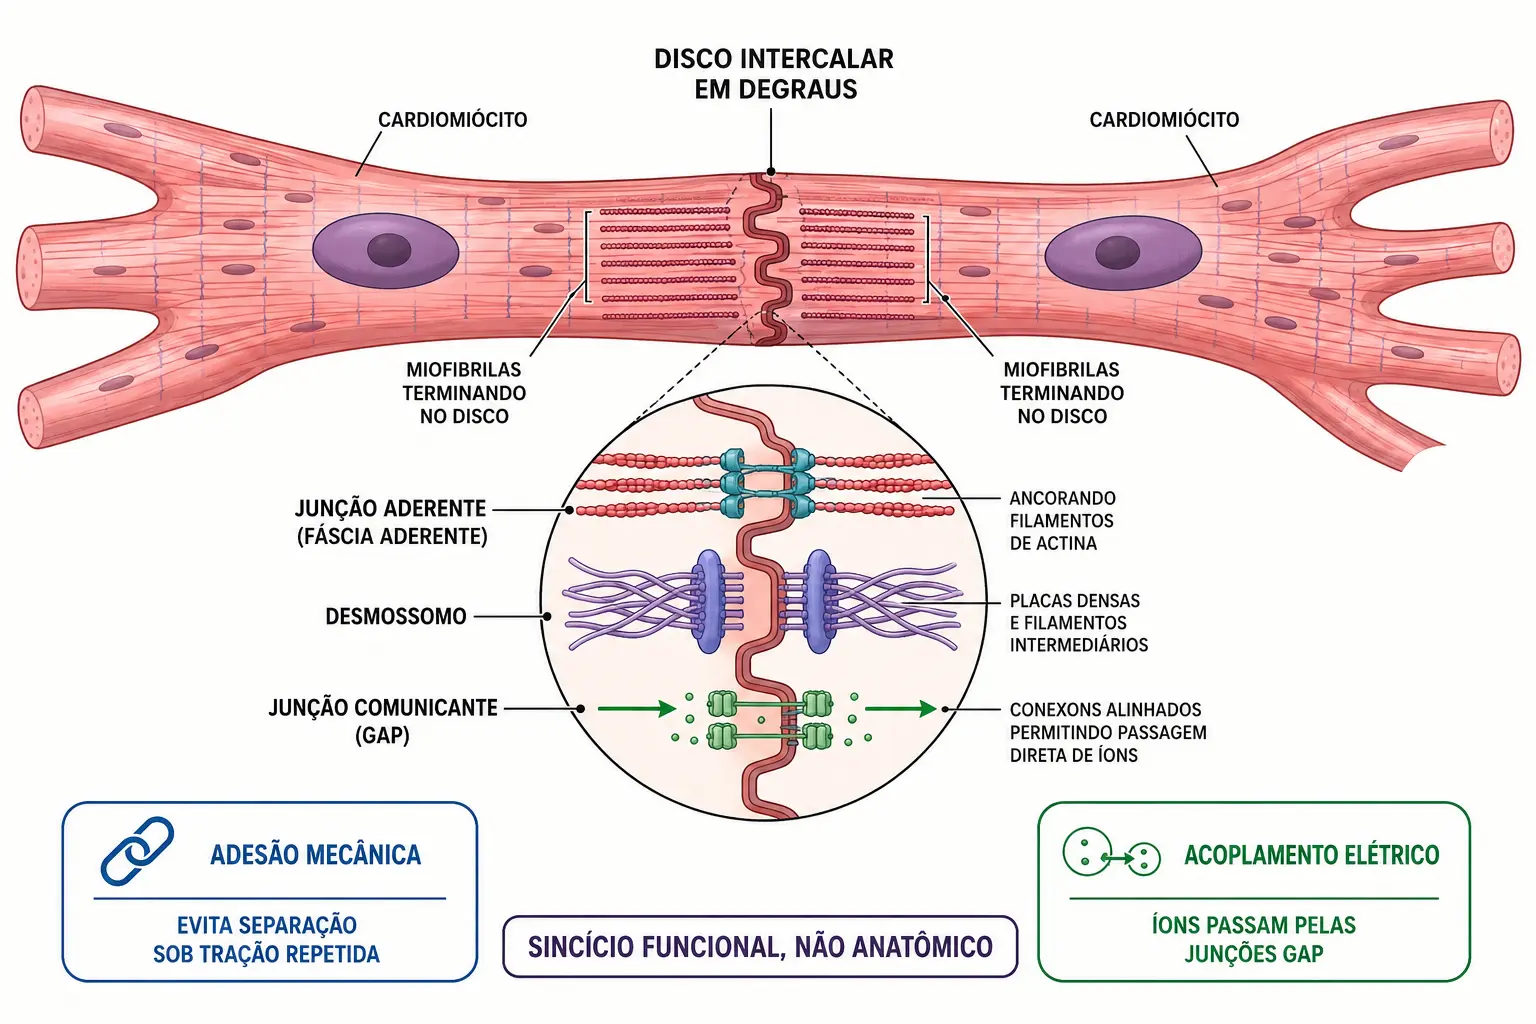
O disco intercalar faz duas coisas de uma vez: segura as células sob tração repetida e deixa o estímulo passar — o que faz o miocárdio contrair como uma unidade só. - 7
Explicar a ausência de estriação no liso pelo arranjo
Actina e miosina existem, ancoradas em corpos densos e dispostas obliquamente. Sem sarcômeros em registro, não há padrão de bandas.
Erro comum: Dizer que o músculo liso não tem filamentos contráteis.
- 8
Relacionar arquitetura oblíqua com tônus sustentado
O arranjo permite encurtamento maior e tensão mantida com baixo custo energético — solução adequada para vaso e víscera oca.
Erro comum: Ler a organização menos regular do liso como forma primitiva, quando ela é adaptada a outra exigência.
- 9
Identificar quem comanda cada tipo
Motoneurônio no esquelético, automatismo próprio no cardíaco, autonômico e estímulos locais no liso. Coração denervado segue batendo; esquelético denervado não.
Erro comum: Supor que toda contração depende de comando nervoso externo.
- 10
Localizar as células satélites no esquelético
Entre a lâmina basal e a membrana da fibra, quiescentes. Diante de lesão, proliferam e reconstroem músculo funcional.
Erro comum: Esquecer que a regeneração depende também do arcabouço preservado — destruída a lâmina basal, o desfecho vira cicatriz.
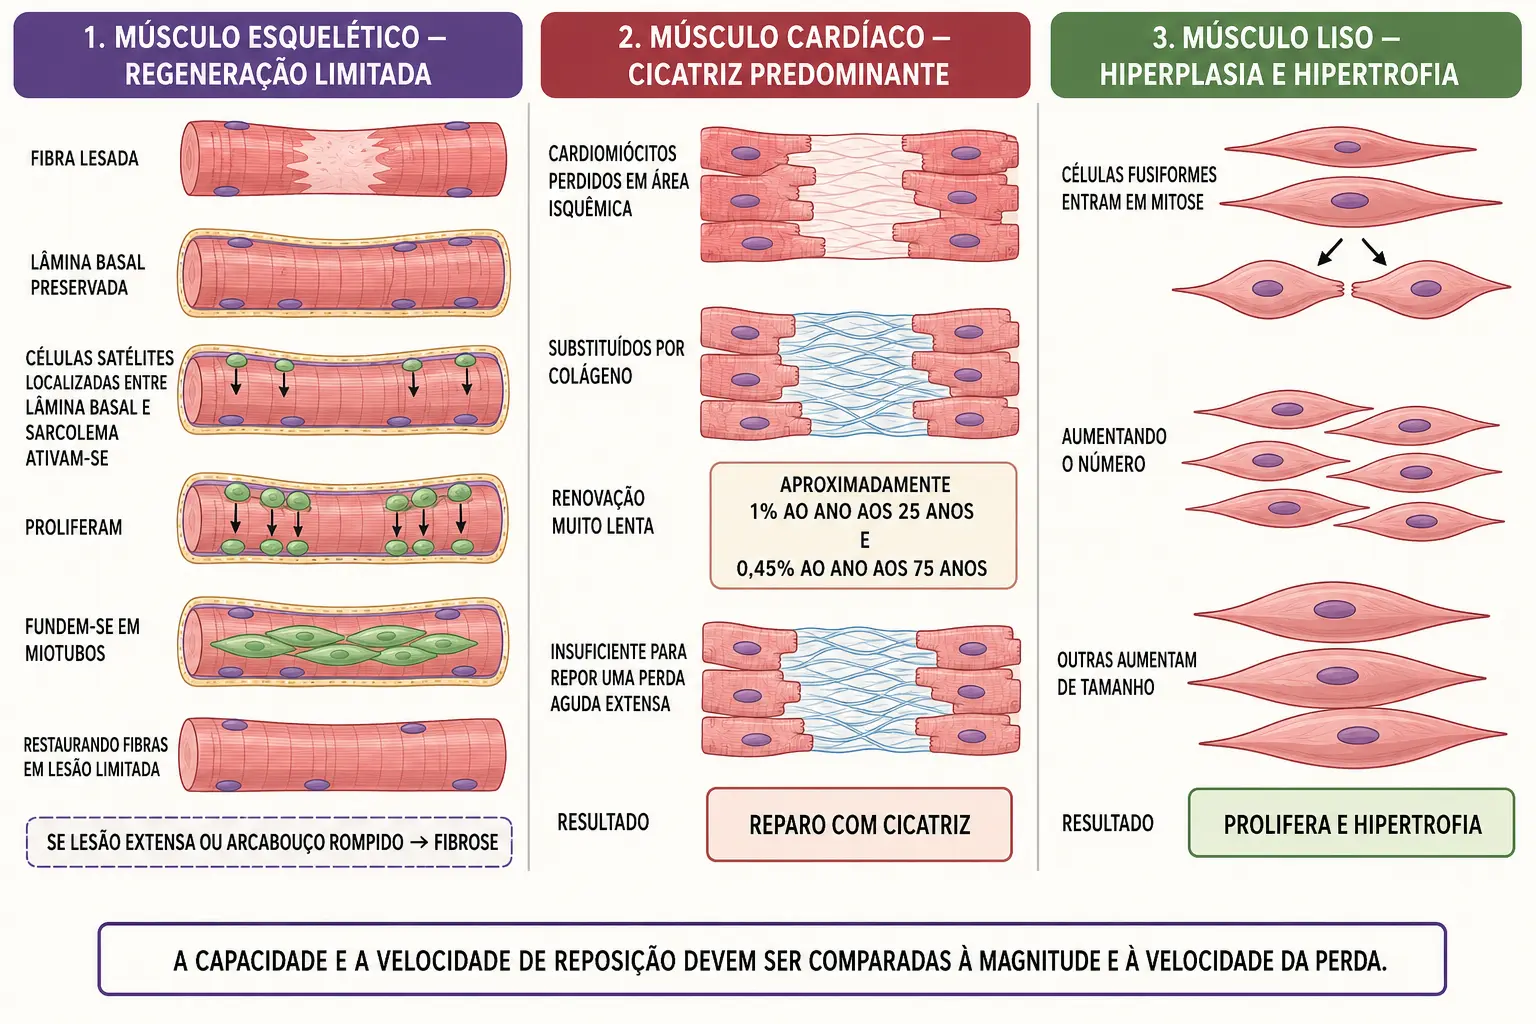
Três lógicas de contração e três destinos de reparo. O coração renova — só que devagar demais para repor o que um infarto destrói em horas. - 11
Distinguir capacidade de velocidade de reposição
O cardiomiócito se renova a cerca de 1% ao ano aos 25 anos, caindo a 0,45% aos 75, com menos de 50% das células trocadas em uma vida. A capacidade existe; a velocidade não cobre um infarto.
Erro comum: Repetir que o coração não regenera — afirmação absoluta que a datação por carbono-14 corrigiu.
- 12
Prever o desfecho comparando velocidades
Perda lenta e reposição lenta podem se equilibrar; perda em horas com reposição em anos termina em conjuntivo, porque o reparo está sempre disponível.
Erro comum: Prever o desfecho apenas pelo tipo de tecido, sem considerar o ritmo da perda.
Normal e alterado
- Estriação avaliada antes de qualquer outro critério.
- Número e posição dos núcleos usados para separar os dois estriados.
- Disco intercalar procurado em corte longitudinal.
- Sarcômero reconhecido com banda A constante e banda I reduzida na contração.
- Unidade motora tratada como unidade funcional do esquelético.
- Desfecho de lesão previsto comparando velocidade de perda e de reposição.
- Tecido estriado classificado sem avaliar os núcleos
- A estriação é comum ao esquelético e ao cardíaco. Sem posição e número de núcleos, os dois ficam indistinguíveis.
- Disco intercalar não encontrado em corte transversal
- Ele atravessa a fibra transversalmente e só é reconhecível quando o corte acompanha o eixo longo da célula.
- Banda A descrita como diminuindo na contração
- Erro de mecanismo: os filamentos deslizam sem encurtar, e por isso a banda A é a única que não muda de tamanho.
- Músculo liso descrito como desprovido de filamentos contráteis
- Ele tem actina e miosina; o que falta é o alinhamento em sarcômeros, e é essa ausência que elimina o padrão de bandas.
- Força atribuída à contração parcial de fibras
- Não existe contração parcial de unidade motora. A gradação se dá por recrutamento de mais unidades.
- Coração denervado que continua batendo
- Esperado: o músculo cardíaco tem automatismo, e a inervação apenas modula frequência e força.
- Área de miocárdio substituída por tecido fibroso após infarto
- A renovação de cerca de 1% ao ano não repõe perda maciça em horas — e o reparo conjuntivo está sempre disponível para ocupar o espaço.
- Laceração muscular que cicatriza em vez de regenerar
- Sugere destruição da lâmina basal e do arcabouço que guiam as células satélites — as mesmas duas condições de regeneração do capítulo do conjuntivo.
Por que isso importa
Os três tipos de músculo compartilham o mesmo princípio de contração — filamentos de actina e miosina deslizando uns sobre os outros — e diferem em como esses filamentos estão organizados e em quem dá a ordem. Dessa dupla diferença decorre tudo o mais.
No esquelético, a organização é máxima: sarcômeros repetidos entre linhas Z, alinhados em registro ao longo da célula e entre células vizinhas. A estriação transversal não é uma estrutura própria — é o efeito óptico dessa regularidade, e é por isso que ela desaparece onde o alinhamento não existe.
A fibra esquelética é multinucleada com núcleos periféricos porque se forma por fusão de mioblastos. Não é excentricidade: uma célula de vários centímetros não seria sustentada por um único núcleo, e a fusão resolve o problema mantendo um citoplasma contínuo.
A unidade funcional do esquelético é a unidade motora — um motoneurônio e todas as fibras que ele inerva — e não a fibra isolada. Como não existe contração parcial de uma unidade motora, a força é graduada por recrutamento: mais unidades, mais força. Músculos de precisão têm unidades pequenas; músculos de força têm unidades grandes.
No cardíaco, os sarcômeros são igualmente regulares, mas as células são ramificadas e têm um a dois núcleos centrais. A estrutura que define o tecido é o disco intercalar, e ele faz duas coisas ao mesmo tempo: desmossomos e junções aderentes seguram mecanicamente as células sob tração repetida, e junções comunicantes deixam íons passarem diretamente de uma célula para a outra.
É essa segunda função que produz o comportamento característico do coração. Como o estímulo se propaga célula a célula sem depender de nervo, o miocárdio funciona como sincício e contrai como unidade — não há recrutamento gradual como no esquelético. Somando-se o automatismo, tem-se um tecido que gera o próprio estímulo e no qual a inervação apenas modula.
No liso, actina e miosina existem, mas ancoradas em corpos densos e dispostas obliquamente, sem sarcômeros em registro. É por isso que ele não é estriado — e vale insistir que ausência de estriação significa ausência de alinhamento, não ausência de filamentos.
Esse arranjo tem vantagem funcional específica: permite encurtamento maior e tensão sustentada com baixo custo energético. É a solução adequada a um tecido que precisa manter tônus por horas, como a parede de um vaso ou de uma víscera oca, e seria inadequada para contração rápida e precisa.
Até aqui, três lógicas de contração. A segunda metade do capítulo é a que responde à cena de abertura, e ela trata de outra diferença entre os três tipos: a capacidade de repor células perdidas.
O esquelético regenera graças às células satélites, uma população quiescente alojada entre a lâmina basal e a membrana da fibra. Diante de lesão, elas proliferam, fundem-se e reconstroem músculo funcional. O limite é o mesmo estabelecido no capítulo do conjuntivo: se a lâmina basal e o arcabouço forem destruídos, falta o andaime que guia as células, e o desfecho passa a ser cicatriz.
O liso mantém capacidade de divisão e pode aumentar em número além de aumentar em tamanho — o que sustenta o espessamento adaptativo de paredes vasculares e viscerais, e também participa de remodelamentos patológicos.
O caso do cardíaco merece atenção porque a resposta mudou, e mudou por causa de um método engenhoso. O ensino tradicional afirmava, de forma absoluta, que cardiomiócitos não se dividem — afirmação difícil de testar, porque não havia como determinar a idade de uma célula dentro de um ser humano.
A solução veio dos testes nucleares atmosféricos da Guerra Fria, que elevaram o carbono-14 da atmosfera; após o tratado que os proibiu, essa concentração passou a cair de forma conhecida. Como o carbono atmosférico entra na cadeia alimentar e é incorporado ao DNA no momento da divisão celular, a quantidade de carbono-14 no DNA de uma célula funciona como registro da data em que ela nasceu.
Aplicado a corações humanos, o método mostrou que cardiomiócitos de fato se renovam, com queda gradual de 1% ao ano aos 25 anos para 0,45% ao ano aos 75 — e que menos de 50% dos cardiomiócitos são trocados ao longo de uma vida normal.
Os dois lados desse achado importam. Contra o absoluto tradicional, a capacidade existe e não é zero; os próprios autores concluem que isso torna racional buscar estratégias terapêuticas que estimulem o processo em doenças cardíacas.
E a favor da observação clínica: 1% ao ano não repõe um infarto. A destruição de uma quantidade enorme de cardiomiócitos em horas não pode ser coberta por uma taxa de reposição que levaria décadas para renovar metade do órgão. O espaço é então ocupado por tecido conjuntivo, que está sempre disponível.
Isso completa a explicação da cena de abertura, e ela usa exatamente a regra estabelecida no capítulo do conjuntivo: quando a reposição do parênquima não dá conta, quem preenche é o reparo. A diferença entre o gastrocnêmio e o miocárdio não é que um regenera e o outro não regenera nada — é que a velocidade de reposição de um é compatível com o ritmo da perda, e a do outro não é.
Guarde essa formulação, porque ela é mais útil que a dicotomia usual. Perguntar se um tecido regenera é menos informativo que perguntar se ele consegue repor na velocidade em que perdeu. Perda lenta com reposição lenta pode se equilibrar; perda em horas com reposição em anos termina em conjuntivo.
Cabe registrar o alcance do método de datação. Ele mede quando o DNA foi sintetizado e permite estimar taxas de renovação em populações celulares, mas produz estimativa populacional a partir de tecido humano post mortem e depende de premissas sobre a incorporação do carbono. Estabelece com solidez que a renovação existe e que é lenta; não descreve o comportamento de um coração doente específico.
Fechando a sequência dos últimos capítulos, há um fio comum que vale nomear. No conjuntivo, manter a matriz mostrou-se um processo contínuo, e não um estado. No osso, essa manutenção exigiu demolição, e suprimi-la deixou o dano acumular. Aqui, a capacidade de repor células define o que sobra depois da lesão — e a diferença entre regenerar e cicatrizar pode ser apenas uma questão de ritmo.
A síntese deve comparar os três músculos pelo mesmo roteiro — célula, organização, controle, regeneração e endereço — preparando o capítulo regional sem antecipá-lo.
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Renovação de cardiomiócitos ao longo da vida | Datação por incorporação de carbono-14 atmosférico ao DNA, aproveitando a elevação produzida por testes nucleares da Guerra Fria e sua queda posterior. Estimativa populacional obtida de tecido humano post mortem, dependente de premissas sobre incorporação do carbono; não descreve o comportamento de um coração doente específico. | Renovação de 1% ao ano aos 25 anos, com queda gradual para 0,45% ao ano aos 75 anos; menos de 50% dos cardiomiócitos são trocados durante uma vida normal | Bergmann O, Bhardwaj RD, Bernard S, et al. Evidence for cardiomyocyte renewal in humans. Science. 2009;324(5923):98-102. doi:10.1126/science.1164680 |
| Implicação do achado para a capacidade regenerativa cardíaca | Mesmo estudo. Corrige o absoluto tradicional de que cardiomiócitos não se renovam, sem sustentar que a taxa observada seja suficiente para repor perda maciça e aguda. | A capacidade de gerar cardiomiócitos existe no coração humano adulto — o que, segundo os autores, torna racional trabalhar no desenvolvimento de estratégias terapêuticas que estimulem esse processo em doenças cardíacas | Bergmann O, Bhardwaj RD, Bernard S, et al. Evidence for cardiomyocyte renewal in humans. Science. 2009;324(5923):98-102. doi:10.1126/science.1164680 |
Três tipos, três lógicas, três destinos
A arquitetura explica a contração; a capacidade de reposição explica o que sobra depois da lesão.
| Aspecto | Esquelético | Cardíaco | Liso |
|---|---|---|---|
| Estriação | Presente | Presente | Ausente (filamentos oblíquos) |
| Núcleos | Muitos, periféricos | Um a dois, centrais | Único, central |
| Junção característica | — | Disco intercalar | Junções comunicantes em muitos locais |
| Comando | Motoneurônio (voluntário) | Automatismo próprio; inervação modula | Autonômico, hormônios e estiramento |
| Gradação de força | Recrutamento de unidades motoras | Sem gradação por recrutamento: sincício | Tônus sustentado, econômico |
| Reposição de células | Células satélites: regenera | Cerca de 1% ao ano aos 25; 0,45% aos 75 | Prolifera |
| Desfecho de perda aguda extensa | Regeneração, se o arcabouço sobreviver | Cicatriz: reposição lenta demais | Espessamento adaptativo ou remodelamento |
- A pergunta útil não é 'este tecido regenera?', e sim 'ele repõe na velocidade em que perde?'.
- Estriação não separa esquelético de cardíaco — núcleos e disco intercalar separam.
Onde se erra
- Classificar músculo apenas pela estriação
- Ela é comum ao esquelético e ao cardíaco. Sem avaliar núcleos e disco intercalar, os dois ficam indistinguíveis.
- Dizer que o coração não regenera
- Absoluto corrigido pela datação por carbono-14: há renovação de cerca de 1% ao ano aos 25, caindo a 0,45% aos 75.
- Concluir, do achado oposto, que o infarto poderia se regenerar
- Menos de 50% dos cardiomiócitos são trocados em uma vida inteira. Essa taxa não cobre perda maciça em horas.
- Imaginar que os filamentos encurtam na contração
- Eles deslizam. É por isso que a banda A mantém o tamanho enquanto a banda I e a zona H diminuem.
- Tratar a fibra como unidade funcional do esquelético
- A unidade é a unidade motora, e é o recrutamento dela que gradua a força — não existe contração parcial.
- Descrever o disco intercalar só como adesão
- Ele também contém junções comunicantes, e é isso que faz o miocárdio funcionar como sincício e contrair junto.
- Dizer que o músculo liso não tem filamentos contráteis
- Tem actina e miosina; falta o alinhamento em sarcômeros, e é a ausência de registro que elimina o padrão de bandas.
- Ler a organização do liso como forma primitiva
- O arranjo oblíquo permite maior encurtamento e tensão sustentada com baixo custo — é adaptação a outra exigência, não simplicidade.
- Supor que toda contração depende de comando nervoso
- O cardíaco tem automatismo e continua batendo denervado; o esquelético denervado não faz nada.
- Esquecer o arcabouço na regeneração muscular
- Células satélites precisam da lâmina basal e do conjuntivo que as guiam. Destruídos, o desfecho é cicatriz mesmo no esquelético.
- Procurar disco intercalar em corte transversal
- Ele atravessa a fibra e só é reconhecível quando o corte acompanha o eixo longo da célula.
- Prever desfecho pelo tipo de tecido sem olhar o ritmo
- A pergunta decisiva é se a reposição acompanha a velocidade da perda — e é ela que separa o gastrocnêmio do miocárdio.
Roteiro de leitura
Percorra o capítulo em três escalas: origem, tecido e relações anatômicas; use a síntese clínica para reuni-las.
- 01Verificar presença de estriação transversal
- 02Avaliar número e posição dos núcleos
- 03Procurar ramificação e disco intercalar em corte longitudinal
- 04Reconhecer o sarcômero e o deslizamento dos filamentos
- 05Identificar a unidade motora como unidade funcional do esquelético
- 06Ler o disco intercalar como adesão mais comunicação
- 07Explicar a ausência de estriação no liso pelo arranjo oblíquo
- 08Identificar quem comanda a contração em cada tipo
- 09Localizar as células satélites e o arcabouço que as guia
- 10Comparar velocidade de perda com velocidade de reposição
- 11Prever regeneração ou cicatriz a partir dessa comparação
Teste-se
Leve para o paciente
Homem de 55 anos chega à sala de emergência e a primeira coisa que você ouve é: "Doutor, tá doendo aqui no meio do peito, um aperto que não passa, e eu tô suando frio desde cedo." Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
Qual achado separa os dois músculos estriados? Por que a banda A não muda de tamanho na contração? Como a força é graduada no esquelético?
A datação por carbono-14 mostrou renovação de 1% ao ano aos 25 anos e menos de 50% dos cardiomiócitos trocados em uma vida. Explique por que esse achado ao mesmo tempo corrige o ensino tradicional e continua explicando por que o infarto deixa cicatriz.