
Morfologia › Locomotor
Músculo esquelético
Cinco dias de cama já custam força
O caso
Rapaz de 22 anos, ativo, teve o joelho imobilizado por cinco dias depois de uma lesão pequena. Ao retirar a imobilização, olha para a própria coxa e não vê diferença: a fita métrica encontra pouco mais de um centímetro de diferença para o outro lado, e um observador desatento diria que os dois membros são iguais.
Mas a perna não responde como antes. Subir um degrau exige um esforço que ele não precisava fazer; estender o joelho contra resistência produz uma força visivelmente menor. A queda de desempenho é muito maior do que o tamanho da coxa sugere.
Aqui está o incômodo. Se músculo fosse simplesmente uma quantidade de material que produz força proporcional ao seu volume, perder pouco volume deveria custar pouca força. Cinco dias parados não deveriam produzir esse efeito — e, ainda assim, produzem.
A explicação está na arquitetura. Um músculo não é uma massa homogênea: é um arranjo de fibras com direção, ângulo e número definidos, ligado ao osso por um sistema contínuo de bainhas, comandado por unidades motoras que precisam ser recrutadas. Volume mede material. Força depende de como esse material está organizado e de quão bem ele é acionado — duas coisas que se perdem antes do material. Este capítulo termina quando a diferença entre 3,5% e 9% ficar previsível.
Da origem ao mapa do corpo
Ato 1 — Embriologia.
Somitos produzem miótomos que migram para tronco e membros levando sua inervação; essa história explica compartimentos e a permanência do nervo com o músculo.
A musculatura esquelética nasce do miótomo, a porção do somito que se destaca da região dorsolateral do dermomiótomo. No tronco, as células ficam perto de onde nasceram; nos membros, precursores migram do dermomiótomo para o interior do broto e só ali se organizam nos músculos que reconhecemos.
Ato 2 — Histologia.
Fibra, sarcômero, junção neuromuscular, células satélites e envoltórios conjuntivos explicam contração, transmissão de força e reparação limitada.
No local de destino, os precursores viram mioblastos, que se alinham e se fundem uns aos outros formando miotubos. A fusão é a característica que define este tecido: a fibra muscular esquelética madura é uma célula única, longa e multinucleada, resultado da junção de centenas de células. Seus núcleos, empurrados para a periferia, ficam logo abaixo do sarcolema.
Nem todos os mioblastos se fundem. Alguns permanecem entre o sarcolema e a lâmina basal da fibra, quiescentes, como células satélites. Elas são a reserva de regeneração do músculo esquelético: diante de lesão, proliferam, se fundem à fibra danificada ou entre si, e restauram tecido contrátil. É a razão de o músculo esquelético regenerar de verdade, ao contrário do cardíaco.
Dentro da fibra, o citoplasma é quase todo ocupado por miofibrilas — feixes cilíndricos paralelos ao eixo da célula. Cada miofibrila é uma fileira de sarcômeros ligados em série, e o sarcômero é a unidade contrátil: o segmento entre duas linhas Z consecutivas.
As fibras não são todas iguais. As tipo I, lentas e oxidativas, têm muitas mitocôndrias, muita mioglobina e capilares abundantes; são resistentes à fadiga e predominam em músculos de sustentação postural. As tipo II, rápidas, têm metabolismo mais glicolítico, contraem com maior velocidade e força, e fatigam antes. Todo músculo humano é uma mistura, com proporções diferentes conforme a função.
Guarde a implicação, porque é ela que responde à cena de abertura: circunferência de coxa e capacidade de gerar força não são a mesma grandeza. Duas coxas com o mesmo perímetro podem produzir forças diferentes se o ângulo de penação, o comprimento das fibras ou a proporção de tecido não contrátil forem diferentes.
Ato 3 — Anatomia.
Origem, inserção, linha de tração e braço de alavanca transformam encurtamento microscópico em movimento articular observável.
Essa migração explica um dos fatos mais úteis da anatomia clínica: a inervação segue o músculo. Como cada precursor leva consigo a conexão com o nível medular de origem, um músculo que migrou longe continua inervado pelo mesmo segmento. É por isso que a inervação de um músculo é uma informação estável, e é isso que torna possível localizar uma lesão de raiz a partir da fraqueza observada.
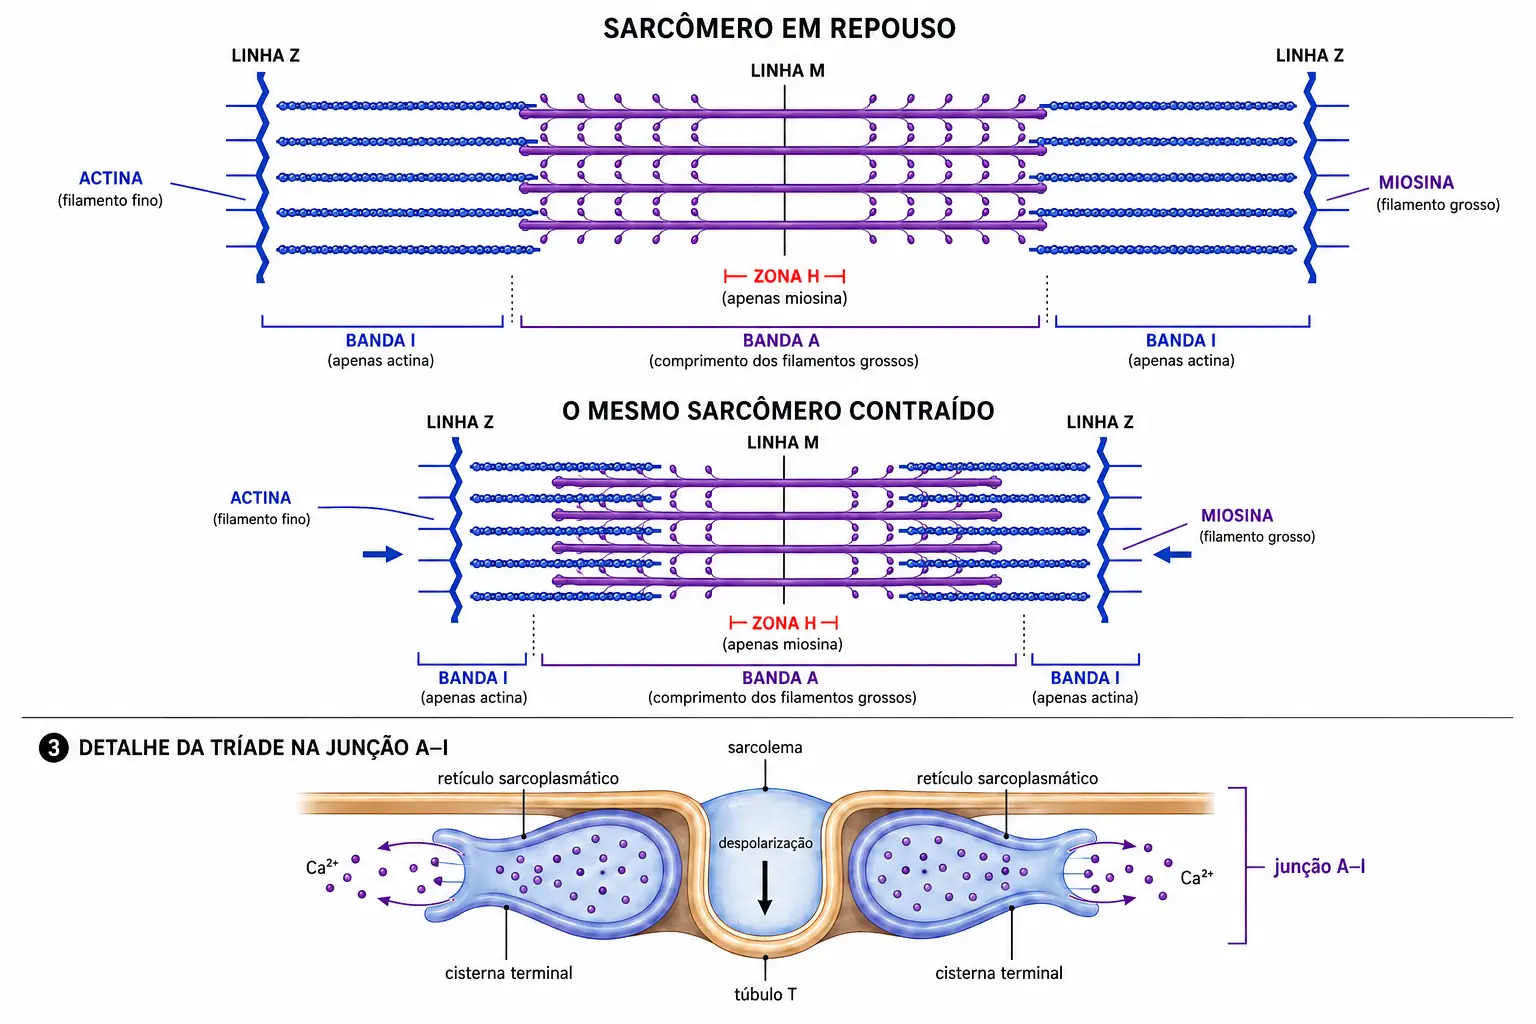
O padrão de faixas que dá nome ao tecido estriado vem do arranjo dos filamentos. A banda A, escura, corresponde ao comprimento dos filamentos grossos de miosina. A banda I, clara, contém apenas filamentos finos de actina e é atravessada ao meio pela linha Z. A zona H, no meio da banda A, é a região onde só há miosina, e a linha M a atravessa no centro.
A contração ocorre por deslizamento: as cabeças de miosina se ligam à actina, giram e puxam o filamento fino em direção ao centro do sarcômero. Os filamentos não encurtam — eles deslizam uns sobre os outros. Por isso, na contração, a banda I e a zona H diminuem e a banda A mantém o comprimento, que é o teste morfológico mais direto de que o modelo está certo.
O controle desse deslizamento é feito pelo cálcio. Em repouso, a tropomiosina cobre os sítios de ligação da actina, e o complexo de troponina a mantém nessa posição. Quando o cálcio se liga à troponina, o conjunto se desloca, os sítios ficam livres e a interação começa. Retirar o cálcio devolve a cobertura e encerra a contração.
O cálcio vem de um sistema de membranas com forma muito característica. O retículo sarcoplasmático envolve cada miofibrila e armazena cálcio; invaginações do sarcolema chamadas túbulos T mergulham para dentro da fibra e levam a despolarização até o interior. No músculo esquelético, cada túbulo T é ladeado por duas cisternas terminais do retículo, formando a tríade, situada na junção entre as bandas A e I.
A tríade resolve um problema de escala. Uma fibra muscular pode ter dezenas de micrômetros de diâmetro, e a despolarização da superfície levaria tempo demais para alcançar as miofibrilas centrais por difusão. Levar a membrana para dentro faz com que todos os sarcômeros de um corte transversal sejam ativados praticamente ao mesmo tempo — de novo, geometria resolvendo um problema de logística.
Fora da fibra, três bainhas de tecido conjuntivo organizam o músculo e transmitem sua força. O endomísio envolve cada fibra individualmente; o perimísio agrupa fibras em fascículos; o epimísio envolve o músculo inteiro. As três são contínuas entre si e continuam no tendão — de modo que o tendão não é uma peça acoplada ao músculo, e sim a convergência das bainhas que já estavam lá.
Essa continuidade tem consequência direta: a força gerada pelo sarcômero não é transmitida ao osso apenas pelas pontas da fibra, mas também lateralmente, através do endomísio, até o tendão. Um músculo é uma rede, não um cabo simples, e é por isso que ele tolera geometrias complexas sem perder eficiência.
A forma externa do músculo — sua arquitetura — é o que decide o compromisso entre força e amplitude, e é o ponto central deste capítulo. Num músculo fusiforme, as fibras correm paralelas ao eixo de tração, do começo ao fim. Elas somam encurtamento em série, e por isso o músculo tem grande excursão e velocidade, mas relativamente poucas fibras dentro de um dado volume.
Num músculo peniforme, as fibras se inserem obliquamente num tendão central, como as barbas de uma pena. Cada fibra é mais curta e trabalha em ângulo — o ângulo de penação —, mas cabem muito mais fibras no mesmo volume. O músculo ganha força e perde excursão.
A grandeza que traduz isso é a área de secção transversa fisiológica: a soma das áreas de todas as fibras, medida perpendicularmente à direção delas, e não ao eixo do músculo. É essa área — e não a circunferência do membro — que se relaciona com a força máxima que aquele músculo pode produzir.
Do lado do comando, a unidade funcional é a unidade motora: um motoneurônio e todas as fibras que ele inerva. A razão de inervação varia enormemente — músculos extrínsecos do olho têm poucas fibras por motoneurônio, o que dá controle finíssimo; músculos grandes de membro inferior têm centenas ou milhares, o que dá força com pouco custo de comando.
Aumentar a força de uma contração se faz de dois modos: recrutando mais unidades motoras e aumentando a frequência de disparo de cada uma. Nenhum dos dois depende de haver mais material — dependem de comando. E é exatamente aí que mora parte da perda que a cena descreve.
Quando um membro é imobilizado, três coisas acontecem em velocidades diferentes. A ativação neural cai quase de imediato, porque o padrão de recrutamento deixa de ser praticado. A qualidade do aparelho contrátil se deteriora em dias, com aumento da sinalização de degradação de proteínas. E a massa diminui mais devagar, porque desmontar material leva tempo.
Se essa ordem estiver certa, a previsão é clara e testável: em prazos curtos, a queda de força deve ser proporcionalmente maior que a queda de massa. Alguém que confunda músculo com volume espera o contrário — ou espera as duas coisas caindo juntas.
Foi exatamente isso que um ensaio mediu. Vinte e quatro homens jovens saudáveis tiveram um joelho imobilizado com gesso de perna inteira, doze deles por cinco dias e doze por catorze dias, com medida da área de secção do quadríceps e da força antes e depois. Em cinco dias, a área caiu 3,5% e a força caiu 9,0%. Em catorze dias, a área caiu 8,4% e a força, 22,9%.
A distância entre os dois números é o achado do capítulo: em ambos os prazos, a força cai cerca de duas vezes e meia mais que a área. Não existe leitura desse resultado em que músculo seja apenas quantidade de material — a perda de força só se explica somando arquitetura, qualidade contrátil e comando à conta do volume.
O mesmo estudo mediu sinais moleculares que ajudam a datar o processo. A expressão de miostatina, que inibe o crescimento muscular, dobrou nos dois grupos; a de MAFbx, ligada à degradação de proteínas, aumentou de modo semelhante aos cinco e aos catorze dias; e a de MuRF1 aumentou de forma significativa apenas aos cinco dias. A montagem do programa catabólico é precoce, e não uma consequência tardia da inatividade.
O que a forma explica
Seis perguntas que separam perda de massa, perda de comando e perda de arquitetura — três causas de fraqueza com prognósticos diferentes.
“Há quanto tempo esse membro está sem uso?”
Cinco dias já reduzem a área de secção do quadríceps em 3,5% e a força em 9,0%. O relógio do desuso é curto, e o prazo muda o que se espera encontrar.
“A fraqueza acompanha um músculo, um nervo periférico ou uma raiz?”
Como a inervação migra junto com o precursor e permanece estável, o padrão de fraqueza localiza a lesão. Um mapa muscular vale mais que a soma de queixas.
“A perda de força é proporcional à perda de volume?”
Se a força caiu muito mais que o volume, o problema não é só material: envolve comando e qualidade contrátil, que se recuperam em ritmo diferente.
“A fraqueza é proximal ou distal, simétrica ou não?”
Distribuição é informação morfológica. Ela orienta se o problema é da fibra, da junção, do nervo ou da raiz.
“Houve esforço excêntrico intenso ou compressão prolongada?”
São mecanismos que lesam a fibra diretamente, e a lesão libera conteúdo intracelular. O contexto muda o que se procura.
“O que está sendo feito para manter o comando enquanto o membro está imobilizado?”
A ativação neural cai primeiro e é a parcela que a imobilização retira mais rápido. Manter recrutamento tem custo baixo e efeito precoce.
Como se orientar
- Distinguir volume de capacidade de gerar força
- Circunferência de membro mede material. Força depende da área de secção fisiológica, do ângulo das fibras e do comando — grandezas diferentes.
- Ter em mente a ordem das perdas
- O comando cai primeiro, a qualidade contrátil em seguida, a massa por último. Prazos curtos mostram sobretudo as duas primeiras.
- Saber que a fibra é uma célula multinucleada
- Ela resulta da fusão de centenas de mioblastos. Isso explica seu tamanho, seus núcleos periféricos e por que reparo não exige recriar a célula inteira.
- Lembrar da célula satélite antes de falar de regeneração
- Ela é a reserva quiescente entre sarcolema e lâmina basal. É a razão de o músculo esquelético regenerar de verdade, ao contrário do cardíaco.
- Ler o tendão como continuidade, não como peça acoplada
- Endomísio, perimísio e epimísio são contínuos entre si e convergem no tendão. A transmissão de força também é lateral, não só pelas pontas da fibra.
- Aceitar que repouso não é neutro
- Imobilizar tem custo mensurável e precoce. A decisão de imobilizar é uma escolha entre dois danos, não uma medida sem preço.
A leitura
Do sarcômero à força que chega ao osso — e de volta, para entender por que a força se perde antes do volume.
- 1
Reconhecer a fibra como célula multinucleada por fusão
Mioblastos se alinham e se fundem em miotubos; a fibra madura é uma célula única e longa, com núcleos empurrados para a periferia, sob o sarcolema.
Erro comum: Descrever núcleos centrais como normais. Núcleo central em fibra madura é achado de regeneração, não o padrão de repouso.
- 2
Localizar as células satélites entre sarcolema e lâmina basal
São mioblastos que não se fundiram e permanecem quiescentes. Diante de lesão, proliferam e restauram tecido contrátil verdadeiro.
Erro comum: Tratar a regeneração muscular como cicatrização por fibrose. Existe reserva celular dedicada, e o resultado pode ser tecido funcional.
- 3
Delimitar o sarcômero entre duas linhas Z
Banda A escura com o comprimento da miosina, banda I clara só com actina, zona H no meio da A e linha M no centro. A unidade contrátil é o segmento Z a Z.
Erro comum: Decorar as faixas sem os filamentos que as produzem. Sem isso, a mudança durante a contração fica arbitrária.
- 4
Testar o modelo de deslizamento pelo comportamento das bandas
Na contração, banda I e zona H diminuem e a banda A mantém o comprimento. Os filamentos deslizam uns sobre os outros; nenhum deles encurta.
Erro comum: Dizer que os filamentos se encurtam. A constância da banda A é a evidência morfológica direta contra essa ideia.
- 5
Seguir o cálcio da tríade até a troponina
O túbulo T leva a despolarização para dentro da fibra, o retículo libera cálcio, o cálcio se liga à troponina, a tropomiosina se desloca e os sítios da actina ficam livres.
Erro comum: Ver a tríade como detalhe de nomenclatura. Ela existe para ativar simultaneamente sarcômeros que estão longe da superfície.
- 6
Classificar as fibras pelo metabolismo e prever a fadiga
Tipo I: muitas mitocôndrias, muita mioglobina, capilares abundantes, resistentes à fadiga. Tipo II: mais glicolíticas, mais rápidas e mais fortes, fatigam antes.
Erro comum: Rotular músculos inteiros como de um só tipo. Todo músculo humano é mistura, com proporção ajustada à sua função.
- 7
Seguir as três bainhas até o tendão
Endomísio em cada fibra, perimísio no fascículo, epimísio no músculo inteiro — contínuos entre si e convergindo no tendão. A força também é transmitida lateralmente.
Erro comum: Ler o tendão como estrutura anexada. Ele é a convergência das bainhas que já organizavam o músculo por dentro.
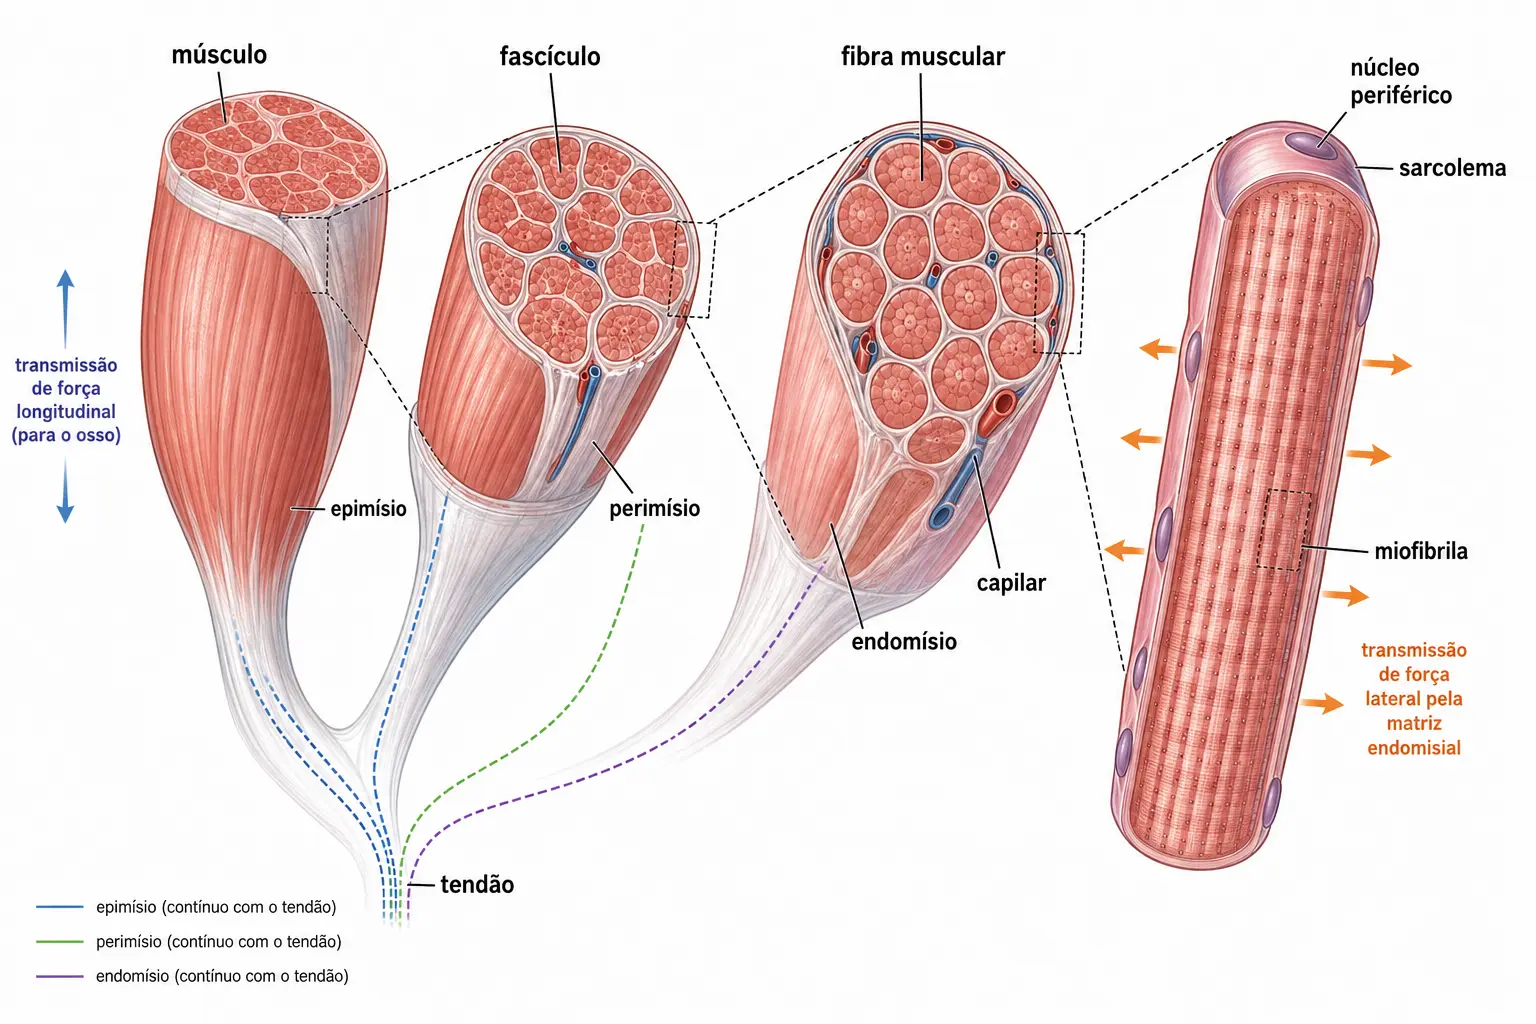
O tendão não é peça acoplada: é a convergência das bainhas que já organizavam o músculo por dentro. Por isso a força também sai pelas laterais da fibra, e não só pelas pontas. - 8
Classificar a arquitetura em fusiforme ou peniforme
Fusiforme: fibras paralelas ao eixo de tração, grande excursão e velocidade. Peniforme: fibras oblíquas a um tendão central, mais fibras no mesmo volume, mais força e menos excursão.
Erro comum: Descrever a forma do músculo como detalhe descritivo. Ela é a variável que decide o compromisso entre força e amplitude.
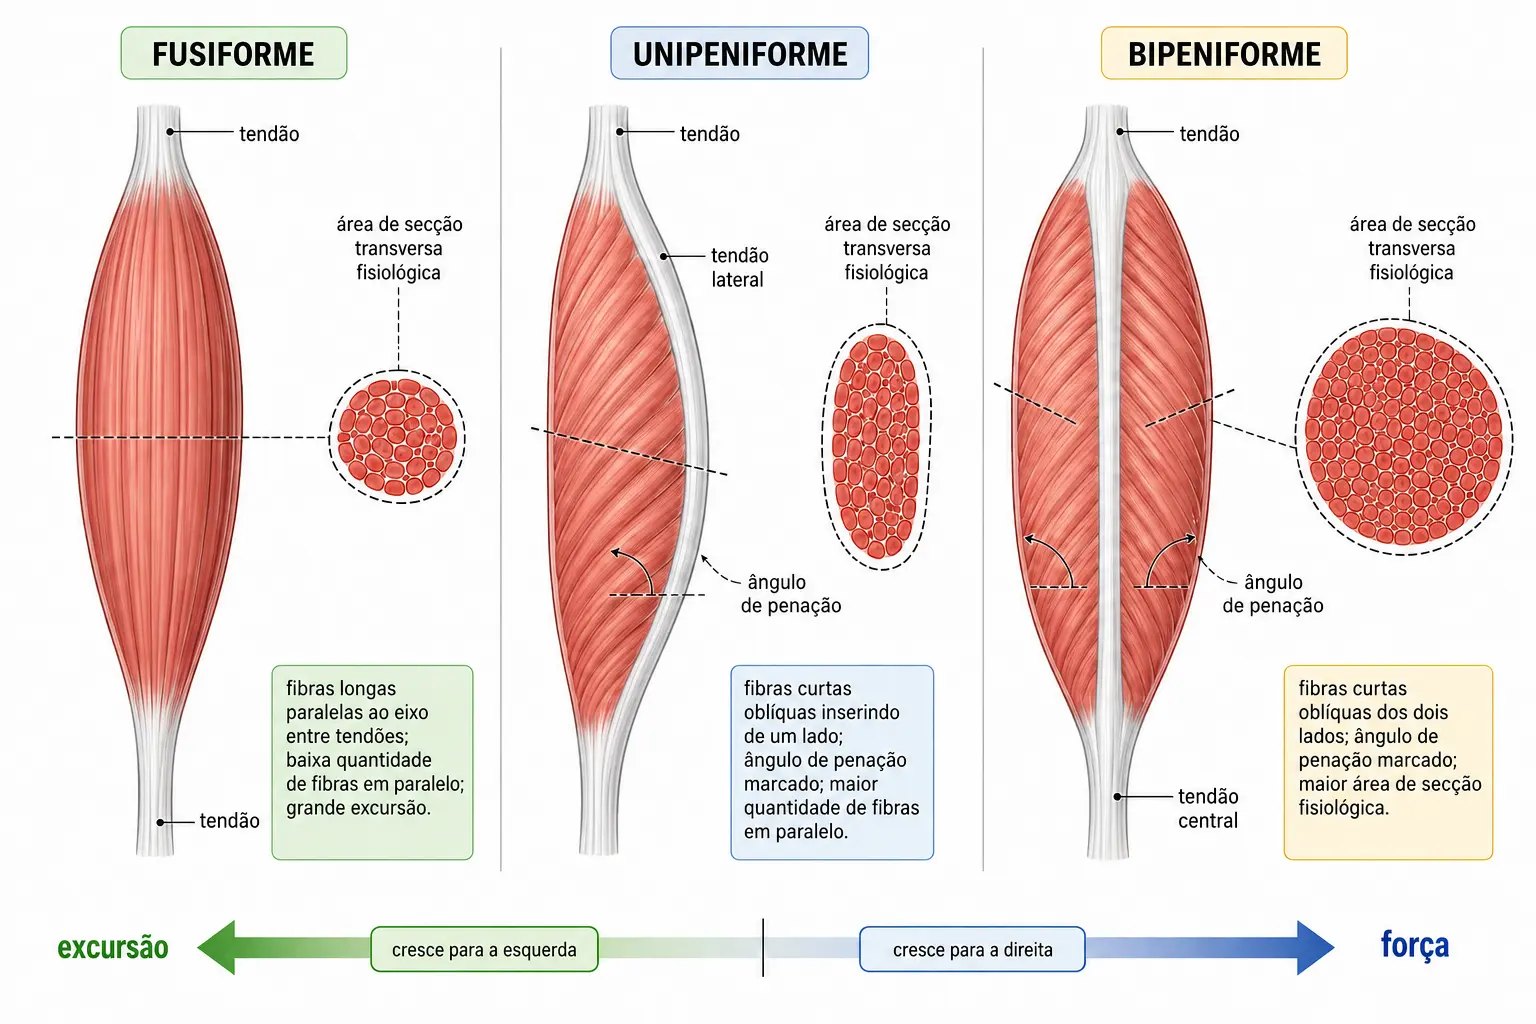
No mesmo volume cabem mais fibras se elas trabalharem em ângulo. O músculo peniforme compra força e paga em excursão — e é por isso que perímetro de membro não mede força. - 9
Medir a área de secção no plano das fibras, não no do membro
A área de secção transversa fisiológica soma as áreas de todas as fibras perpendicularmente à direção delas. É essa medida que se relaciona com a força máxima do músculo.
Erro comum: Usar circunferência de coxa como medida de força. Ela inclui osso, gordura e tecido conjuntivo, e ignora o ângulo das fibras.
- 10
Identificar a unidade motora e sua razão de inervação
Um motoneurônio mais todas as fibras que ele inerva. Poucas fibras por neurônio dão controle fino; muitas fibras dão força com pouco custo de comando.
Erro comum: Supor razão de inervação uniforme. Ela varia de poucas unidades a milhares, e essa variação é o que distingue precisão de potência.
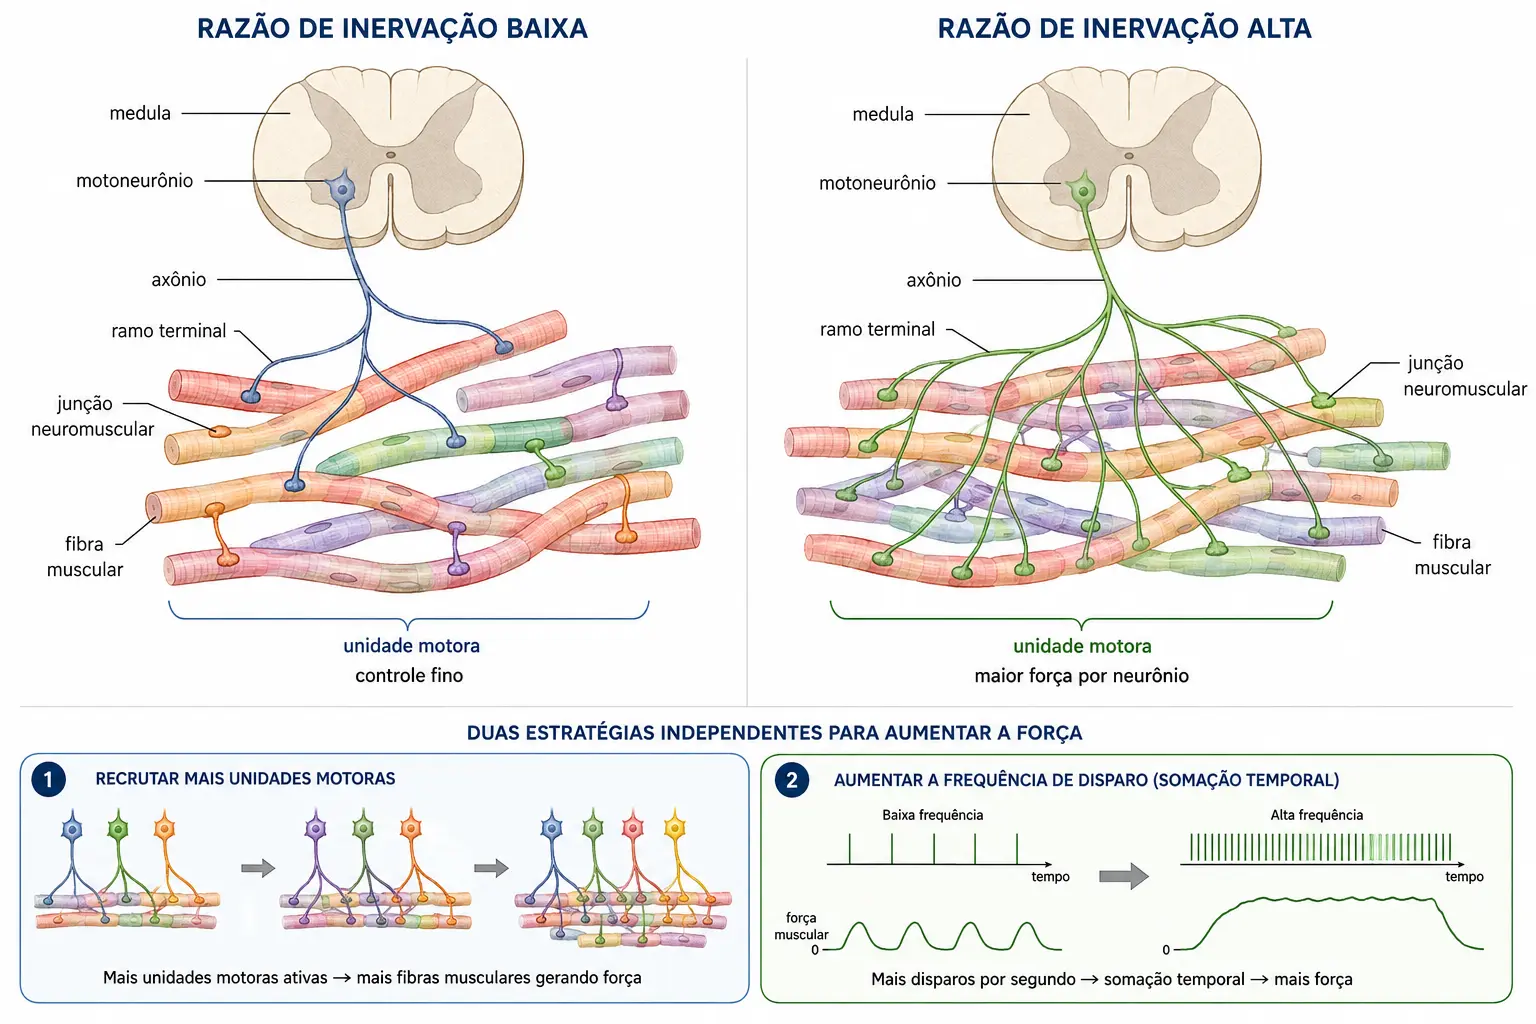
Força também é comando. Aumentar a contração se faz recrutando mais unidades e disparando mais rápido — e nada disso exige mais material. - 11
Ordenar as perdas do desuso pelo tempo
A ativação neural cai quase imediatamente, a qualidade do aparelho contrátil se deteriora em dias e a massa diminui mais devagar, porque desmontar material leva tempo.
Erro comum: Esperar que força e volume caiam na mesma proporção. Em prazos curtos, a força cai proporcionalmente muito mais.
- 12
Quantificar o custo da imobilização antes de prescrevê-la
Em cinco dias de imobilização de um joelho, a área de secção do quadríceps caiu 3,5% e a força caiu 9,0%. Em catorze dias, 8,4% e 22,9%.
Erro comum: Tratar repouso como medida sem preço. Imobilizar é escolher entre dois danos, e o custo do desuso começa a se acumular em dias.
Normal e alterado
- Fibra muscular longa, multinucleada, com núcleos periféricos logo abaixo do sarcolema.
- Estriação transversal regular, com bandas A e I alternadas em todas as miofibrilas alinhadas.
- Células satélites quiescentes entre o sarcolema e a lâmina basal.
- Capilares abundantes correndo no endomísio, entre fibras vizinhas.
- Bainhas conjuntivas contínuas entre si, convergindo ordenadamente no tendão.
- Mistura de fibras tipo I e tipo II em proporção compatível com a função daquele músculo.
- Queda de 3,5% na área de secção do quadríceps após cinco dias de imobilização
- Perda de material mensurável em prazo muito curto. É pequena o bastante para passar despercebida à inspeção e à fita métrica.
- Queda de 9,0% na força após esses mesmos cinco dias
- A força caiu cerca de duas vezes e meia mais que a área. A diferença é atribuível a comando e qualidade contrátil, que não aparecem no volume.
- Expressão de miostatina dobrada já aos cinco dias de imobilização
- Sinalização inibidora do crescimento muscular ativada precocemente. O programa catabólico é montado cedo, e não como consequência tardia.
- Núcleos centrais em fibras musculares
- Sinal de regeneração em curso. Na fibra madura em repouso, os núcleos ficam na periferia, sob o sarcolema.
- Perda de força desproporcional ao volume observado no membro
- Sugere componente de comando e de qualidade contrátil, e não apenas de massa. Recupera-se em ritmo diferente do da hipertrofia.
- Fraqueza que respeita o território de um nervo periférico ou de uma raiz
- Como a inervação acompanha o músculo desde a migração embrionária, o padrão de fraqueza localiza a lesão no nervo ou no segmento medular.
- Perda de amplitude articular após imobilização prolongada, além da fraqueza
- As bainhas conjuntivas e a cápsula encurtam. O prejuízo do desuso não se limita ao tecido contrátil.
- Recuperação de força mais rápida que a recuperação de volume ao retomar o uso
- Espelho da ordem de perda: o comando volta antes de o material ser reconstruído. É o comportamento esperado, e não sinal de erro de medida.
Por que isso importa
Músculo esquelético é um tecido em que a forma aparece em quatro escalas ao mesmo tempo, e todas as quatro importam para a força que chega ao osso: a do sarcômero, a da fibra, a da arquitetura do ventre muscular e a da unidade motora.
Na escala do sarcômero, a contração é deslizamento. As cabeças de miosina puxam a actina em direção ao centro, e o comprimento dos filamentos permanece constante — motivo pelo qual a banda A não muda enquanto a banda I e a zona H diminuem. É uma previsão morfológica que se confirma na própria imagem.
Na escala da fibra, o problema é de logística: uma célula tão grossa não pode depender de difusão para ativar suas miofibrilas centrais. A solução é a mesma do ósteon no capítulo do osso — levar a estrutura até onde ela é necessária. O túbulo T mergulha a membrana para dentro e a tríade coloca o estoque de cálcio ao lado dela.
Na escala do ventre muscular, aparece o compromisso que responde à cena. Fibras paralelas ao eixo somam encurtamento e dão excursão e velocidade; fibras oblíquas cabem em maior número no mesmo volume e dão força. A grandeza que traduz isso é a área de secção transversa fisiológica, medida perpendicular às fibras — e não a circunferência do membro.
Na escala da unidade motora, força é comando. Aumentar a contração se faz recrutando mais unidades motoras e elevando a frequência de disparo, e nenhuma das duas exige mais material. Isso significa que existe uma parcela grande da força disponível que depende de prática, e não de massa.
Postas as quatro escalas juntas, a pergunta da cena se reformula. Se a força depende de material, de arquitetura, de qualidade contrátil e de comando, então perder força e perder volume não têm por que andar no mesmo ritmo. E a ordem esperada é: comando primeiro, qualidade em seguida, material por último.
Um ensaio testou exatamente isso. Vinte e quatro homens jovens saudáveis, com média de 23 anos, tiveram um joelho imobilizado por gesso de perna inteira: doze por cinco dias e doze por catorze dias. Antes e imediatamente após, foram medidas a área de secção transversa do quadríceps, a massa magra da perna e a força, além de biópsias do vasto lateral.
Aos cinco dias, a área de secção do quadríceps caiu 3,5 ± 0,5% e a força caiu 9,0 ± 2,3%. A massa magra da perna caiu 1,4 ± 0,7%, uma diferença que sequer alcançou significância estatística. Aos catorze dias, a área caiu 8,4 ± 2,8%, a massa magra 3,1 ± 0,7% e a força 22,9 ± 2,6%.
A proporção se manteve nos dois prazos: a força caiu cerca de duas vezes e meia mais que a área de secção. Não há como acomodar isso num modelo em que músculo seja apenas quantidade de material — perder 3,5% de área não produz 9% de queda de força se a única variável for volume.
É por isso que a coxa do rapaz da cena parece igual e não responde igual. A fita métrica mediu perímetro, que inclui osso, gordura e conjuntivo, e que responde tardiamente. A perda ocorreu sobretudo nas parcelas que a fita não alcança: o padrão de recrutamento das unidades motoras e a qualidade do aparelho contrátil.
O estudo também mediu sinais moleculares, o que permite datar o processo em vez de apenas descrevê-lo. A expressão de miostatina — que inibe o crescimento muscular — dobrou nos dois grupos. A de MAFbx, ligada à via de degradação de proteínas, aumentou de modo semelhante aos cinco e aos catorze dias. E a de MuRF1 aumentou significativamente apenas aos cinco dias.
O padrão de MuRF1 é o mais instrutivo dos três. Um sinal que sobe cedo e não se mantém indica que a resposta catabólica é montada logo no início do desuso, e não acionada aos poucos conforme a inatividade se prolonga. Não é uma consequência tardia; é uma reação imediata.
As limitações desse estudo precisam ficar claras, porque elas delimitam bastante o alcance dos números. A amostra é de 24 homens jovens e saudáveis, doze por grupo, sem mulheres e sem idosos. O modelo é de imobilização de um joelho com gesso, em pessoas saudáveis que continuavam se alimentando e caminhando com muletas.
Isso não é o mesmo que repouso no leito, nem que internação, nem que doença aguda com inflamação sistêmica — situações em que a perda tende a ser maior e mais rápida. Dizer que cinco dias custam 9% de força descreve o que aconteceu naquele modelo, e não uma constante universal.
Há ainda uma limitação de desenho que vale nomear: as medidas são de antes e depois, sem grupo de comparação sem imobilização, e os dois grupos são independentes (cinco e catorze dias), não a mesma pessoa medida duas vezes. A comparação entre prazos é entre grupos, com doze participantes cada.
Mesmo com essas ressalvas, a direção e a magnitude do achado sustentam a conclusão morfológica que interessa aqui: repouso não é neutro, e a parcela que se perde primeiro não é a que se mede por inspeção. Um custo de 9% de força em cinco dias, em jovens saudáveis, é um piso, não um teto.
A boa notícia mora na mesma morfologia. Como a maior parte da perda precoce é de comando e de qualidade contrátil, e não de material desmontado, ela também é a parcela que retorna mais rápido quando o uso é retomado. A recuperação de força tende a preceder a recuperação de volume — o espelho exato da ordem de perda.
E há reserva estrutural para reconstruir o que se perdeu. As células satélites, quiescentes entre sarcolema e lâmina basal, proliferam e se fundem à fibra lesada, restaurando tecido contrátil verdadeiro. É essa reserva que separa o músculo esquelético do cardíaco, e é ela que torna a reabilitação uma intervenção sobre a forma, e não apenas sobre o desempenho.
Fechando a cadeia deste capítulo: o sarcômero produz força por deslizamento; a tríade garante que todos os sarcômeros sejam ativados juntos; a arquitetura das fibras decide quanto dessa força cabe num dado volume; as bainhas conduzem tudo até o tendão; e a unidade motora determina quanto dessa capacidade é efetivamente acionada. Volume mede um desses cinco elos. Força depende dos cinco.
O capítulo deve terminar com unidade motora e compartimento muscular como escalas complementares, preparando as regiões sem repetir a comparação dos três tipos musculares.
| Sinal | Medida | Valor | Fonte |
|---|---|---|---|
| Perda de área de secção e de força após 5 dias de imobilização de um joelho | Ensaio em 12 homens jovens saudáveis (23 ± 1 ano) com gesso de perna inteira, com medidas antes e imediatamente após. Modelo de imobilização em pessoas saudáveis, sem grupo de comparação sem imobilização e sem mulheres ou idosos; não equivale a repouso no leito nem a doença aguda. | Área de secção transversa do quadríceps: queda de 3,5 ± 0,5% (P < 0,0001). Força: queda de 9,0 ± 2,3% (P < 0,0001). Massa magra da perna: queda de 1,4 ± 0,7% (P = 0,07) | Wall BT, Dirks ML, Snijders T, Senden JM, Dolmans J, van Loon LJ. Substantial skeletal muscle loss occurs during only 5 days of disuse. Acta Physiol (Oxf). 2014;210(3):600-11. doi:10.1111/apha.12190 |
| Perda após 14 dias de imobilização | Outros 12 participantes do mesmo estudo, com o mesmo protocolo. A comparação entre 5 e 14 dias é entre grupos independentes de 12 pessoas, e não medidas repetidas nos mesmos indivíduos. | Área de secção transversa do quadríceps: queda de 8,4 ± 2,8% (P < 0,001). Massa magra da perna: queda de 3,1 ± 0,7% (P < 0,01). Força: queda de 22,9 ± 2,6% (P < 0,001) | Wall BT, Dirks ML, Snijders T, Senden JM, Dolmans J, van Loon LJ. Substantial skeletal muscle loss occurs during only 5 days of disuse. Acta Physiol (Oxf). 2014;210(3):600-11. doi:10.1111/apha.12190 |
| Sinalização molecular do desuso | Biópsias do vasto lateral dos mesmos 24 participantes. São medidas de expressão de RNA mensageiro em músculo, obtidas em dois momentos e em amostra pequena; indicam ativação precoce de vias catabólicas, sem medir diretamente a taxa de degradação de proteína. | Expressão de miostatina no músculo dobrou nos dois grupos (P < 0,05); MAFbx aumentou de modo semelhante aos 5 e aos 14 dias; MuRF1 aumentou de forma significativa apenas aos 5 dias | Wall BT, Dirks ML, Snijders T, Senden JM, Dolmans J, van Loon LJ. Substantial skeletal muscle loss occurs during only 5 days of disuse. Acta Physiol (Oxf). 2014;210(3):600-11. doi:10.1111/apha.12190 |
Fusiforme e peniforme: o mesmo volume, duas máquinas
A arquitetura das fibras dentro do ventre muscular decide o compromisso entre força e amplitude, e é por isso que perímetro de membro não mede força.
| Aspecto | Fusiforme | Peniforme |
|---|---|---|
| Direção das fibras | Paralelas ao eixo de tração | Oblíquas a um tendão central, em ângulo de penação |
| Comprimento das fibras | Longas, muitos sarcômeros em série | Curtas, poucos sarcômeros em série |
| Número de fibras no mesmo volume | Menor | Maior |
| Área de secção fisiológica | Menor | Maior |
| Força máxima | Menor | Maior |
| Excursão e velocidade de encurtamento | Maiores | Menores |
| Exemplos | Bíceps braquial, sartório | Reto femoral, deltoide, interósseos |
| O que o perímetro do membro informa | Pouco sobre força | Ainda menos, porque o ângulo das fibras não aparece |
- A área de secção transversa fisiológica é medida perpendicularmente às fibras, e não ao eixo do músculo — é essa diferença que faz o músculo peniforme render mais força no mesmo volume.
- Força também é comando: recrutar mais unidades motoras e disparar em maior frequência aumenta a contração sem exigir mais material.
Onde se erra
- Usar circunferência de membro como medida de força
- O perímetro inclui osso, gordura e conjuntivo e ignora o ângulo das fibras. Força se relaciona com a área de secção fisiológica, não com o perímetro.
- Esperar que força e volume caiam na mesma proporção
- Em cinco dias de imobilização, a área caiu 3,5% e a força caiu 9,0%. A distância entre os dois números é o ponto, não um erro de medida.
- Dizer que os filamentos encurtam durante a contração
- Eles deslizam. A banda A mantém o comprimento enquanto a banda I e a zona H diminuem, e essa constância é a evidência direta.
- Tratar a tríade como detalhe de nomenclatura
- Ela leva a despolarização para dentro de uma célula grossa demais para depender de difusão. É solução de logística, como o ósteon.
- Descrever núcleos centrais como padrão normal da fibra
- Na fibra madura em repouso os núcleos são periféricos. Núcleo central indica regeneração em curso.
- Ler o tendão como peça acoplada ao músculo
- Endomísio, perimísio e epimísio são contínuos e convergem nele. A força também sai lateralmente pela fibra, e não só pelas pontas.
- Rotular músculos inteiros como de um único tipo de fibra
- Todo músculo humano é mistura. O que varia é a proporção entre tipo I e tipo II, ajustada à função daquele músculo.
- Supor razão de inervação uniforme entre os músculos
- Ela vai de pouquíssimas fibras por motoneurônio, nos músculos do olho, a centenas ou milhares nos grandes músculos de membro.
- Confundir regeneração muscular com cicatrização fibrosa
- Existe reserva dedicada — as células satélites, entre sarcolema e lâmina basal — capaz de restaurar tecido contrátil verdadeiro.
- Tratar imobilização como medida sem custo
- O custo é mensurável e precoce, e o sinal molecular de degradação já está montado no quinto dia. Imobilizar é escolher entre dois danos.
- Generalizar os 9% de perda para qualquer paciente
- O estudo foi feito em 24 homens jovens saudáveis com gesso em um joelho. Em doença aguda ou repouso no leito, a perda tende a ser maior.
- Interpretar recuperação rápida de força como erro de avaliação
- É o espelho da ordem de perda: o comando volta antes de o material ser reconstruído, e força tende a preceder volume na recuperação.
Roteiro de leitura
Percorra o capítulo em três escalas: origem, tecido e relações anatômicas; use a síntese clínica para reuni-las.
- 01Reconhecer a fibra como célula multinucleada formada por fusão
- 02Localizar as células satélites entre sarcolema e lâmina basal
- 03Delimitar o sarcômero entre duas linhas Z e nomear as bandas
- 04Testar o modelo de deslizamento pelo comportamento das bandas
- 05Seguir o cálcio da tríade até a troponina
- 06Classificar as fibras pelo metabolismo e prever a fadiga
- 07Seguir endomísio, perimísio e epimísio até o tendão
- 08Classificar a arquitetura em fusiforme ou peniforme
- 09Medir a área de secção no plano das fibras
- 10Identificar a unidade motora e sua razão de inervação
- 11Ordenar as perdas do desuso pelo tempo
- 12Quantificar o custo da imobilização antes de indicá-la
Teste-se
Leve para o paciente
Mulher de 68 anos dá entrada no pronto atendimento e a primeira coisa que você ouve é: "Doutor, eu caí no quintal e meu punho direito ficou torto e doendo muito." Agora é sua vez: conduza a anamnese, examine e monte o seu raciocínio.
Revisão espaçada
Por que a banda A não muda de comprimento durante a contração? Para que serve a tríade numa fibra tão grossa? Qual é a diferença entre área de secção transversa fisiológica e circunferência do membro?
Explique por que cinco dias de imobilização reduziram a área de secção do quadríceps em 3,5% e a força em 9,0%, usando as quatro escalas de forma do músculo. Depois diga o que esse estudo, feito em 24 homens jovens saudáveis, não permite generalizar.